PpTIFY5A/10A-PpTGA2.1-L复合物通过响应水杨酸信号拮抗乙烯和茉莉酸信号延缓沙梨果实衰老
- 2026-09-23 00:35:47
期刊:Postharvest Biology and Technology
DOI:10.1016/j.postharvbio.2026.114326
发表时间:2026年7月
发文团队:河北农业大学园艺学院石海燕教授团队
摘要
激素相互作用调节果实衰老,但水杨酸(SA)、茉莉酸(JA)和乙烯在沙梨中的作用仍不清楚。 两个响应SA信号的转录因子 PpTIFY5A 和 PpTIFY10A 被确定为果实衰老的正调节因子。 两者均受乙烯诱导,受SA抑制,并在收获后达到峰值。 烟草亚细胞定位在细胞核。沉默 PpTIFY5A/10A 可延缓衰老,表现为保持硬度和延长保质期、减少乙烯和 JA、增加 SA、抑制细胞壁降解酶并减轻氧化应激,而过表达则产生相反的效果。 SA 处理减轻了 PpTIFY 介导的衰老现象。 从机制上讲,PpTIFYs 与 SA 信号蛋白 PpTGA2.1-L 相互作用并抑制 PpMYC2; PpTIFY10A 与 PpMYC2 形成复合物,响应JA信号。 PpMYC2 负向调节 PpERF109-L,激活乙烯生物合成基因 PpACO11,连接 JA 和乙烯途径。 这些结果揭示了 SA-TIFY-MYC2-ERF-乙烯通路调控沙梨衰老,这为沙梨采后果实品质提升提供了直接的分子靶点。
结果
结果一:PpTIFY5A和PpTIFY10A是受水杨酸调控的核转录因子
PpTIFY5A和PpTIFY10A是受水杨酸抑制、被乙烯利诱导、并在采后表达显著上升的两个核转录因子:SA处理浓度依赖性地抑制二者表达,其中PpTIFY5A在0.2 mM SA下抑制最强,PpTIFY10A在2.0 mM SA下抑制最明显,且0.2 mM SA处理期间二者表达始终低于对照;相反,乙烯利强烈诱导二者表达,300 mg/L处理下各时间点均升高。果实发育期(花后60–145天)二者表达较低,采后显著增加,PpTIFY10A在第10天达到峰值,PpTIFY5A在第20天达到峰值,提示二者在成熟和衰老中具有时间上不同的作用。进一步研究发现,PpTIFY5A和PpTIFY10A能与PpTGA2.1-L发生物理互作,从而进入SA响应模块,但PpTGA2.1-L既不激活也不抑制二者启动子,说明这种结合主要发生在转录后或蛋白层面。综上,PpTIFY5A和PpTIFY10A是连接SA信号与果实采后衰老进程的重要调控因子。
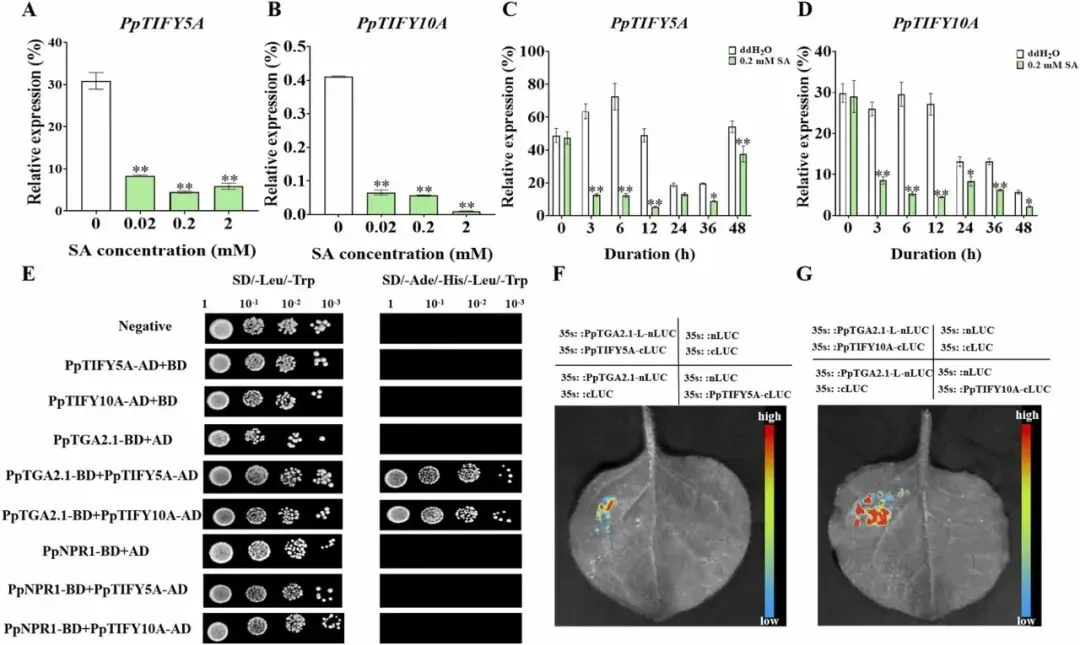
图1
系统发育分析表明,PpTIFY5A和PpTIFY10A均属于JAZ亚家族,具有保守的N端TIFY结构域和C端Jas基序;基序分析发现所有TIFY蛋白中均存在一个共同基序Motif2,但其功能尚不明确。基因结构与系统发育关系密切,尤其在亚科内表现明显。已鉴定的38个TIFY基因分布不均,其中PpTIFY10A位于2号染色体,而PpTIFY5A位于未分配支架contig01025上。蛋白长度在111–395个氨基酸之间,理论pI为4.69–9.60,提示不同TIFY蛋白对细胞微环境具有适应性差异。亚细胞定位预测和实验检测均确认TIFY蛋白定位于细胞核,包括PpTIFY5A和PpTIFY10A。蛋白互作分析显示PpTIFY5A与PpTIFY10A之间存在潜在直接互作,并通过酵母双杂交和荧光素酶互补成像实验得到验证。总体而言,PpTIFY5A和PpTIFY10A是典型的核定位JAZ亚家族TIFY蛋白,彼此可发生直接蛋白互作,并具有保守的结构与基序特征。
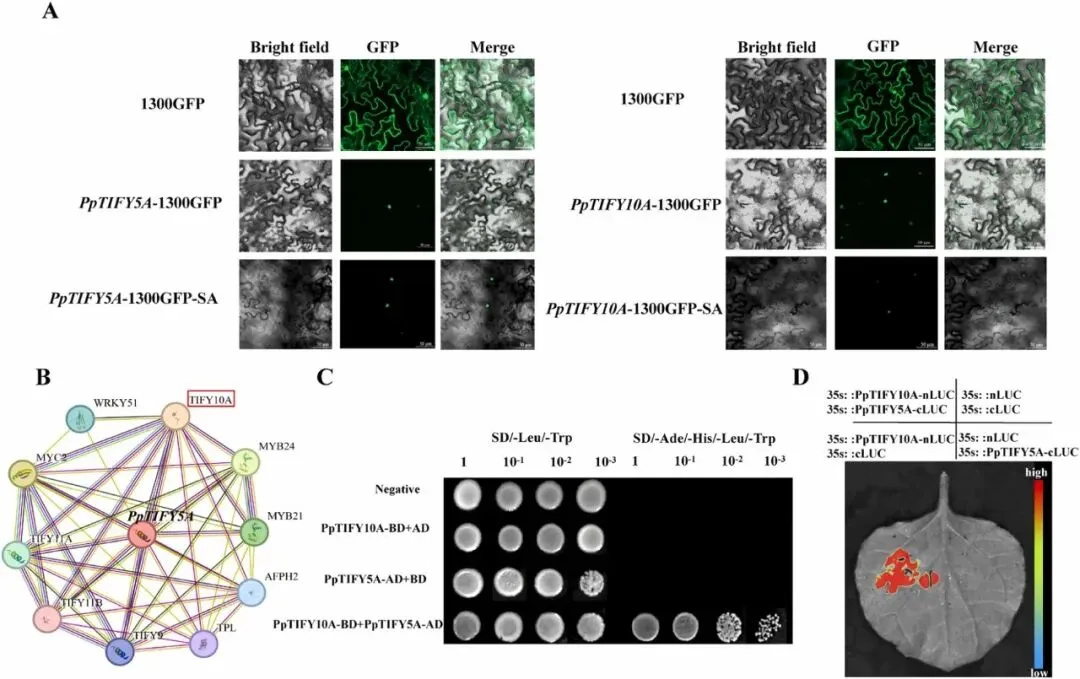
图2
结果二:PpTIFY5A和PpTIFY10A作为沙梨衰老的正调节剂
为研究PpTIFY5A和PpTIFY10A在沙梨果实衰老中的作用,采用农杆菌介导的病毒诱导基因沉默(VIGS)和过表达(OE)两种瞬时基因操作方法。采后10天,沉默PpTIFY5A或PpTIFY10A的果实果皮萎缩延迟、组织塌陷减轻,共沉默两个基因表现出更明显的衰老延迟表型;相反,过表达PpTIFY5A或PpTIFY10A加速果皮退化,共过表达进一步促进衰老进程。外源SA增强了PpTIFY沉默的延衰效应,并缓解了PpTIFY过表达的促衰效应。RT–qPCR分析确认VIGS系中目标基因被高效抑制,转基因果实中过表达水平显著升高,验证了两种瞬时操作系统的功能性。总体而言,PpTIFY5A和PpTIFY10A是沙梨果实衰老的正调控因子,而SA可拮抗其促衰老作用。
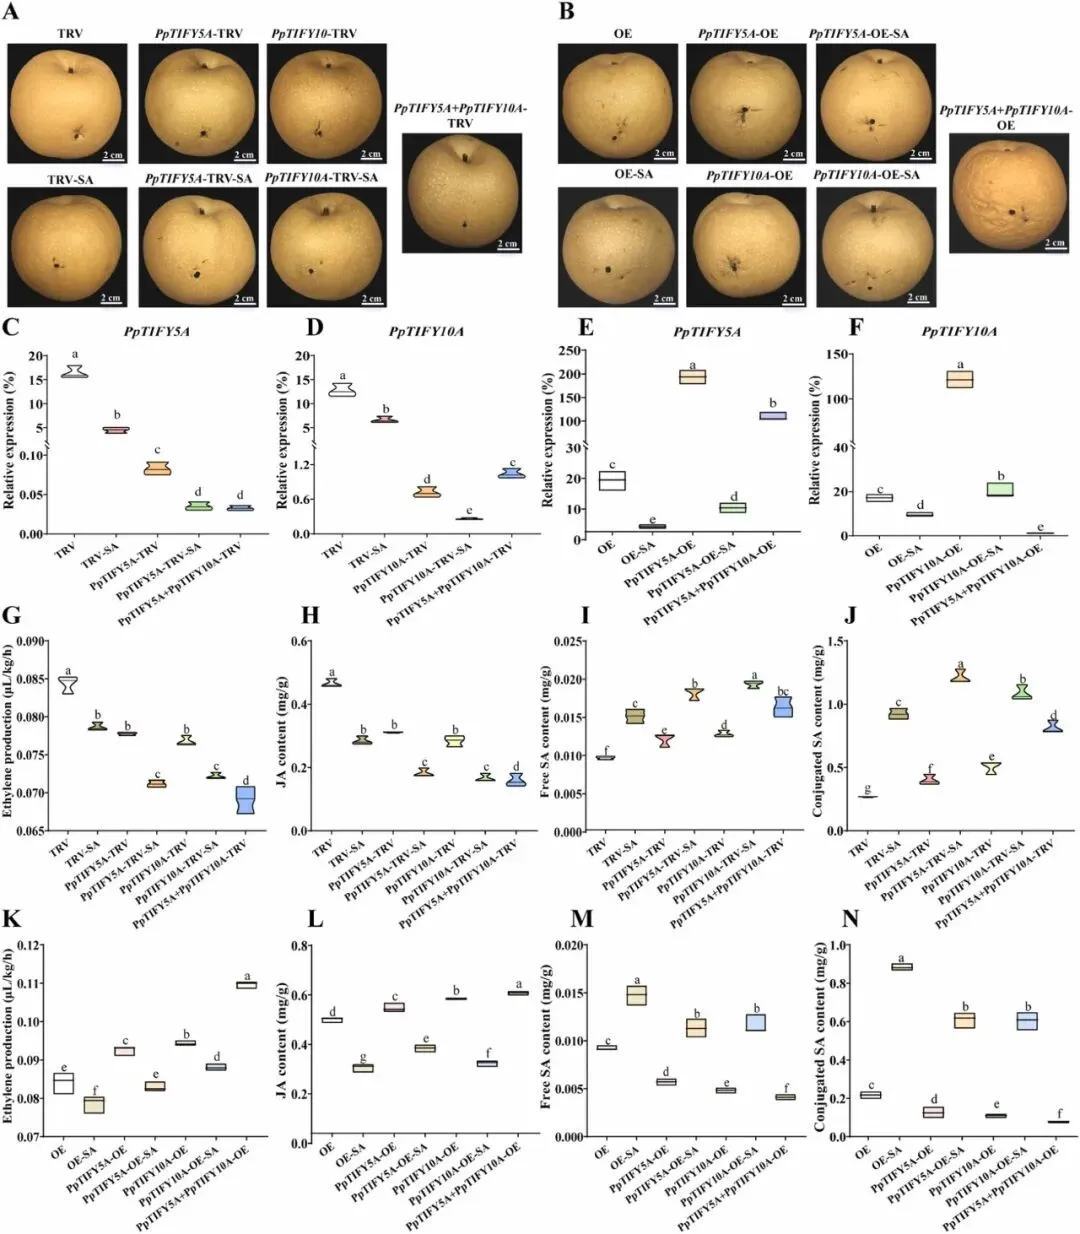
图3
激素分析表明,沉默PpTIFY5A和PpTIFY10A可降低乙烯和JA积累,提高游离态和结合态SA水平;过表达则相反,增加乙烯和JA、降低SA,而外源SA处理能逆转过表达引起的激素变化,并进一步提升沉默果实中的SA含量。细胞壁代谢方面,沉默PpTIFY5A/10A可维持果实硬度,降低PG、PME和CX活性并下调其编码基因表达,过表达则加速果实软化和细胞壁降解,外源SA可减轻过表达果实的组织劣化并增强沉默果实的细胞壁完整性。氧化还原分析显示,沉默该基因可减少O₂•⁻、H₂O₂和MDA积累,增强SOD、POD和CAT活性并上调其编码基因表达,过表达则加重氧化损伤并抑制抗氧化防御,而外源SA能恢复过表达果实的氧化还原稳态并进一步提升沉默果实的抗氧化能力。综合以上结果,PpTIFY5A和PpTIFY10A是沙梨果实衰老的正调控因子,SA则是PpTIFY介导衰老过程的关键拮抗剂。
结果三:PpTIFY5A和PpTIFY10A的过度表达加速沙梨老茧的衰老
为进一步验证PpTIFY5A和PpTIFY10A在沙梨衰老中的作用,研究构建了稳定过表达这两个基因的沙梨愈伤组织,并与野生型对照一起用SA或ACC处理培养40天。结果发现,野生型愈伤组织仅表现轻度衰老,而过表达PpTIFY5A或PpTIFY10A的愈伤组织衰老表型更严重;SA处理可延缓转基因愈伤组织衰老,ACC处理则加速衰老。生理分析表明,过表达PpTIFY5A或PpTIFY10A导致SA水平降低、JA含量升高,MDA积累显著增加,SOD、POD和CAT活性及其编码基因PpSOD1、PpPOD1和PpCAT1表达下降,说明氧化应激增强;SA处理可部分恢复抗氧化酶活性和基因表达,减轻过表达诱导的衰老,而ACC处理则进一步抑制抗氧化酶活性并增加MDA含量,加剧衰老。此外,过表达还显著增强PG、PME和CX活性,并上调PpPG1、PpPME2和PpCEL3表达,促进细胞壁降解。综上所述,PpTIFY5A和PpTIFY10A至少部分通过加剧氧化应激和加速细胞壁解体来促进沙梨愈伤组织衰老,而SA可拮抗这一促衰老效应。
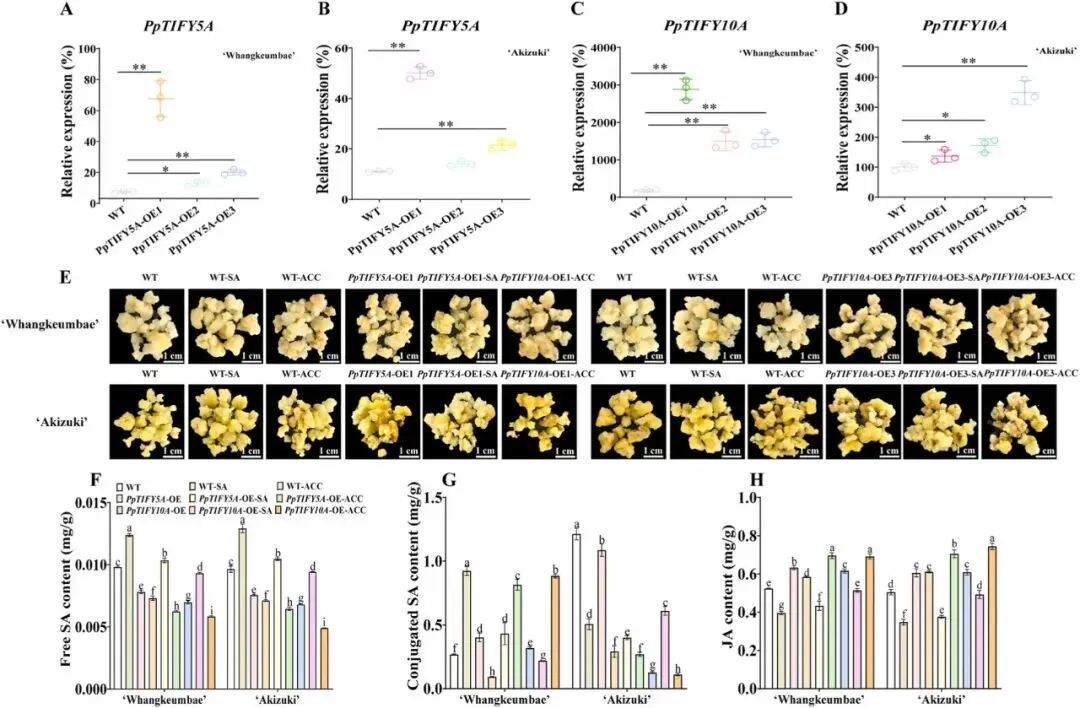
图4
结果四:PpTIFY5A和PpTIFY10A直接抑制PpMYC2转录
JAZ与MYC之间的调控互作是JA信号传递的基础,而PpTIFY5A和PpTIFY10A均属于JAZ蛋白。为明确二者与PpMYC2的关系,研究结合了蛋白互作、启动子结合和报告基因检测:Y2H和LCI显示PpTIFY10A能与PpMYC2形成稳定蛋白复合物,表明二者存在直接物理互作;功能上,PpTIFY5A和PpTIFY10A均下调PpMYC2表达。将PpMYC2启动子分为P1和P2片段后,Y1H显示二者均特异性结合P1片段,表明它们作为直接转录调控因子发挥作用;双荧光素酶报告系统进一步证实,在烟草中瞬时过表达PpTIFY5A或PpTIFY10A显著抑制PpMYC2启动子驱动的LUC活性,说明它们负调控PpMYC2转录。综上,PpTIFY5A和PpTIFY10A直接抑制PpMYC2,且PpTIFY10A还能与PpMYC2形成蛋白复合体,二者在调节JA介导的转录网络中具有协同作用。
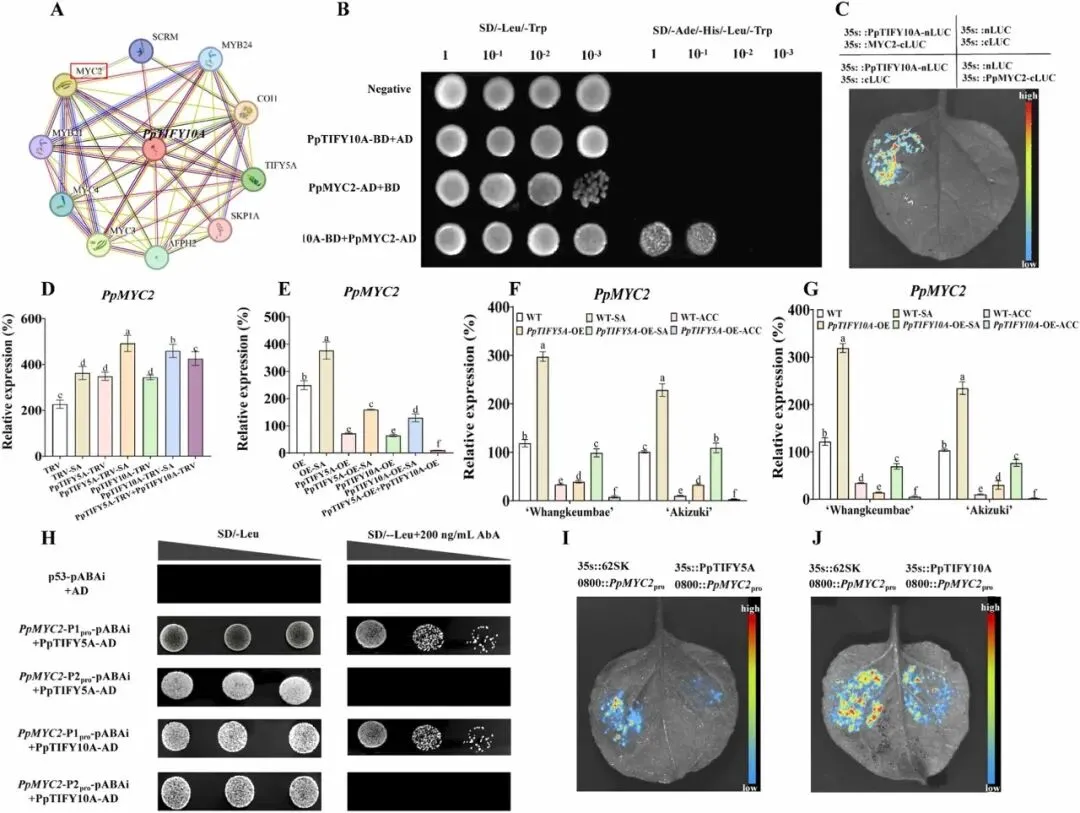
图5
结果五:PpMYC2的沉默促进沙梨果的衰老
在沙梨早期果实发育过程中,PpMYC2表达逐渐升高,并在花后145天达到峰值,与果实品质形成的关键期一致。激素调控方面,SA可上调PpMYC2表达,其中0.2 mM诱导作用最强;而ETH作用相反,在所有测试浓度下均以剂量依赖性方式抑制PpMYC2表达,400 mg/L时抑制最强,即使300 mg/L处理下各时间点表达仍显著低于未处理对照,表明ETH会系统性干扰PpMYC2的转录调控。
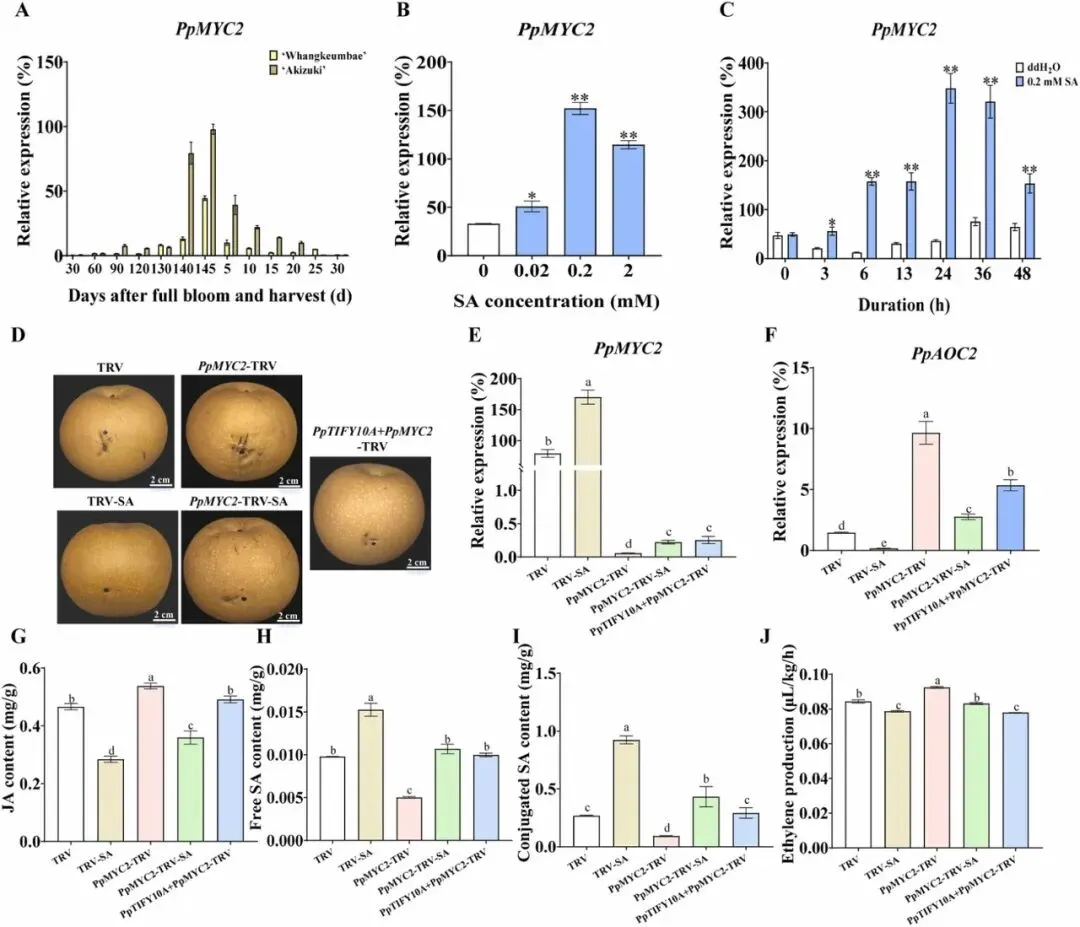
图6
在秋月梨中瞬时沉默PpMYC2会加速室温下10天内的果皮皱缩,而水杨酸处理可缓解该表型,共沉默PpTIFY10A也能部分挽救皱缩,表明二者在质地调控中具有协同作用。分子层面,PpMYC2沉默导致乙烯产生增加、SA水平下降、JA水平升高,并上调PpAOC2表达,这些激素变化可被水杨酸处理或PpTIFY10A共沉默缓解;同时,PpMYC2沉默降低果实硬度,增强PG、PME和CX活性并上调PpPG1、PpPME2和PpCEL3表达,这些变化也可被SA或PpTIFY10A共沉默部分恢复。此外,PpMYC2沉默诱导氧化应激,表现为O₂•⁻、H₂O₂和MDA升高,同时抑制SOD、POD和CAT活性并下调PpSOD1、PpPOD1和PpCAT1表达,而水杨酸处理或PpTIFY10A共沉默可缓解这些氧化应激指标。总之,PpMYC2在中枢层面调控果实皱缩、乙烯生物合成、软化和氧化应激,PpTIFY10A与SA协同作用,SA则减轻了PpMYC2沉默带来的不良反应。
结果六:PpMYC2与PpERF109-L相互作用,PpERF109-L调控PpACO11表达
鉴于乙烯和JA是果实成熟的关键调控因子,研究进一步探究了JA响应因子PpMYC2是否与乙烯信号发生互作。网络分析预测PpMYC2与PpERF109-L存在相互作用,并通过Y2H和LCI验证了二者之间显著的蛋白—蛋白互作。PpERF109-L启动子含有MYC结合的G-box基序,Y1H和LUC实验表明PpMYC2负调控PpERF109-L。沉默PpMYC2会导致乙烯产量显著增加、果实硬度下降;启动子分析显示乙烯生物合成基因PpACO3、PpACO11以及细胞壁相关基因PpPG1均含ERF结合元件,Y1H和LUC进一步确认PpERF109-L能特异性激活PpACO11启动子。综合来看,这些结果支持如下模型:上游PpTGA2.1-L–TIFYs复合物调控PpMYC2,PpMYC2负调控PpERF109-L,从而减弱PpERF109-L对PpACO11的激活,减少乙烯产生并延缓沙梨果实衰老。
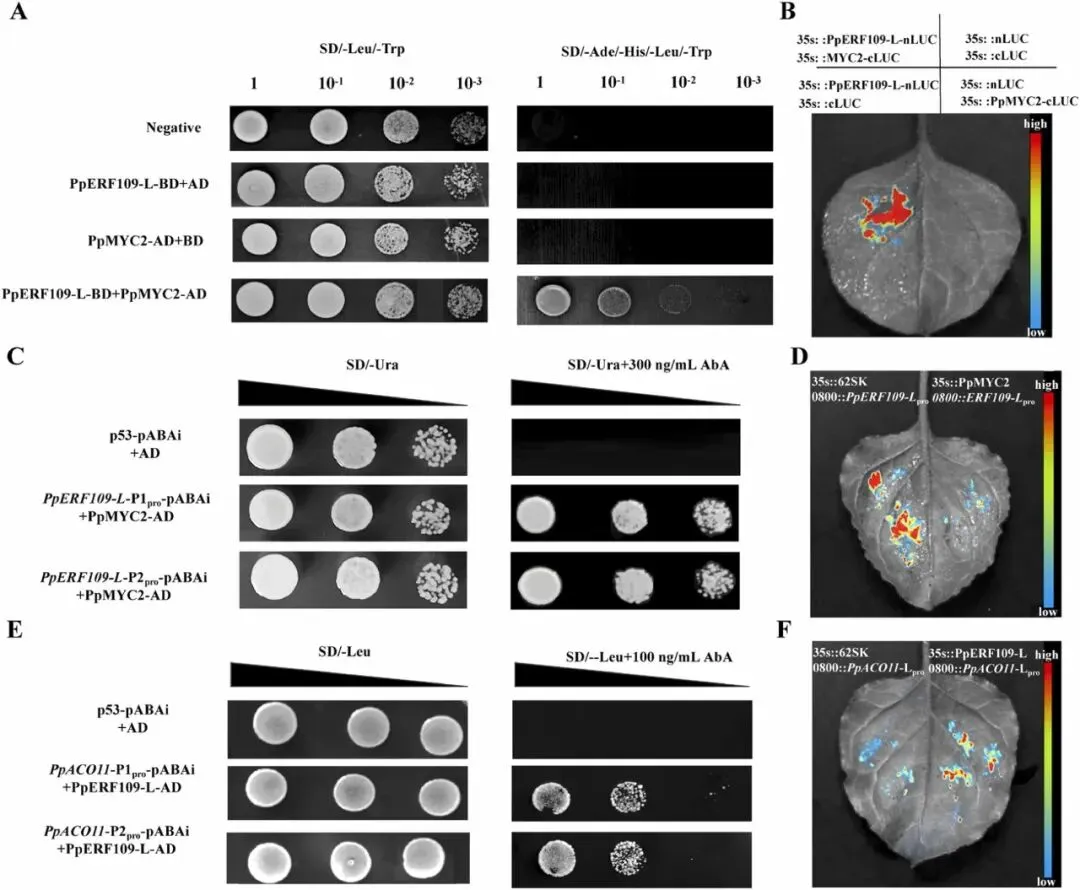
图8
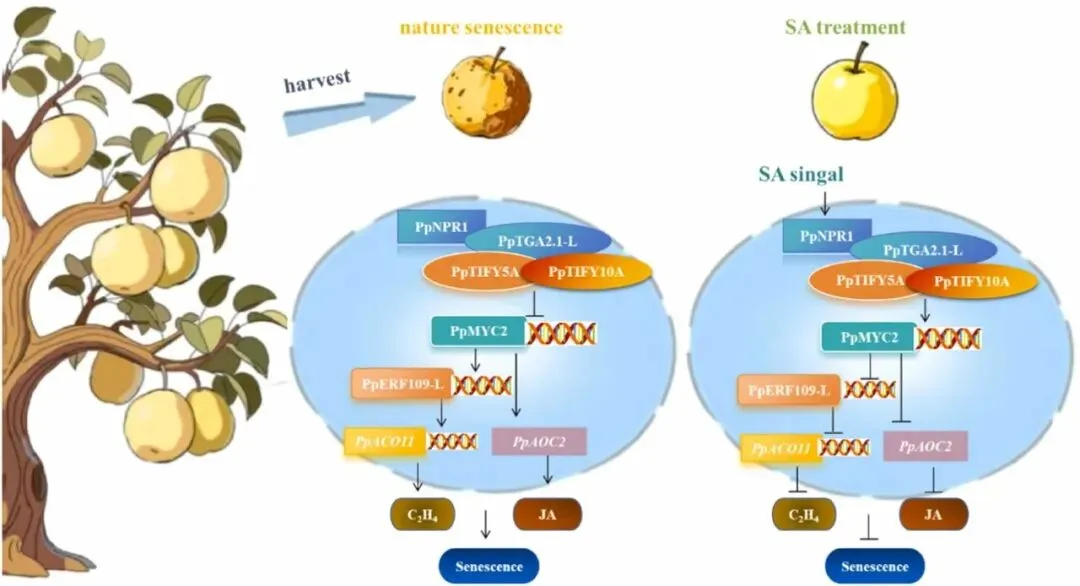
图9
总结
本研究围绕沙梨采后衰老的激素调控机制展开,鉴定出两个TIFY家族转录因子 PpTIFY5A 和 PpTIFY10A 。它们是沙梨果实衰老的正向调控因子。二者受水杨酸(SA)抑制、被乙烯诱导,并在采后表达显著升高。功能验证表明,沉默这两个基因可延缓衰老,表现为维持果实硬度、降低乙烯和JA水平、提高SA含量、减轻氧化损伤并抑制细胞壁降解酶活性;过表达则加速衰老,而外源SA能逆转其促衰老效应。在机制层面,PpTIIFY蛋白作为枢纽,通过与PpTGA2.1-L和PpMYC2的分子相互作用整合SA和JA信号。该调控回路最终通过激活PpMYC2–PpERF109-L–PpACO11转录模块,从而将SA–TIFY–MYC2–ERF–乙烯轴定义为控制沙梨采获后衰老的核心调控模块。
— END —
编辑:李玉兰
审核:覃雪晶