科研记录16 | 【文献汇报PPT】【PNAS】共享的空间与时间原则支配跨时间尺度的连接组动力学
- 2026-11-05 13:44:23
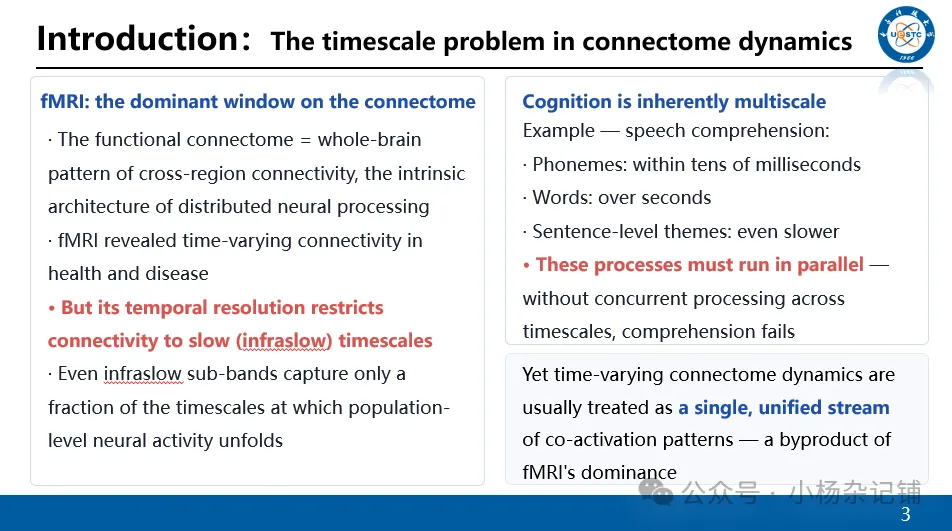
连接组动力学中的时间尺度问题
大规模功能连接组是跨脑区连接的全脑模式,是分布式神经加工的内在架构。
过去二十年,fMRI 主导了这个领域,让我们看到了健康和疾病中随时间变化的连接。
但 fMRI 的时间分辨率很有限,只能覆盖极慢的信号段,即使拆分成多个亚频段,也只占神经活动时间尺度的一小部分。
右边是文章用言语理解举例:大脑加工音素只需几十毫秒,加工词需要几秒,句级主题更慢,而且这些过程必须并行进行,否则言语理解就无法完成。
矛盾就在这里:认知天然是多尺度的,但我们研究连接组动态时,往往默认它是一条单一的共激活流,这很大程度上是 fMRI 主导地位带来的结果。
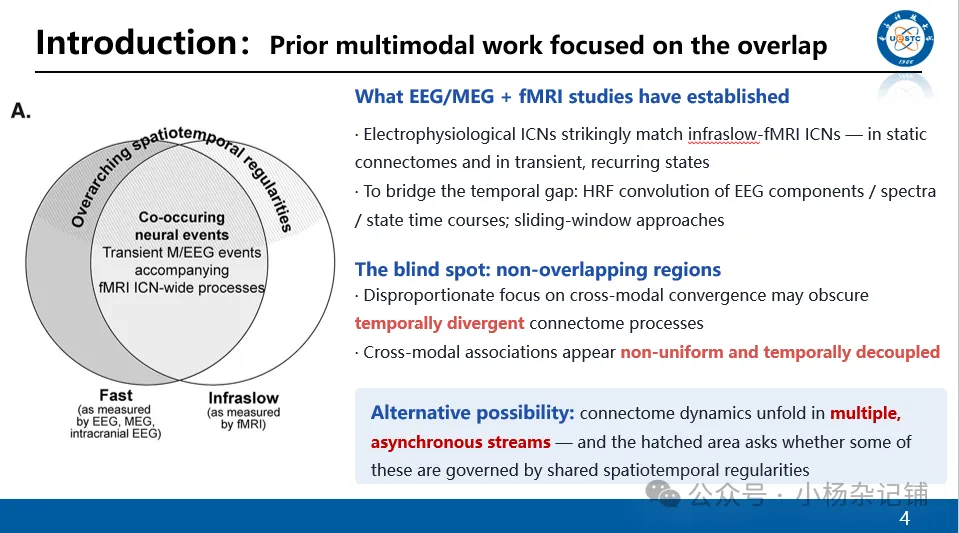
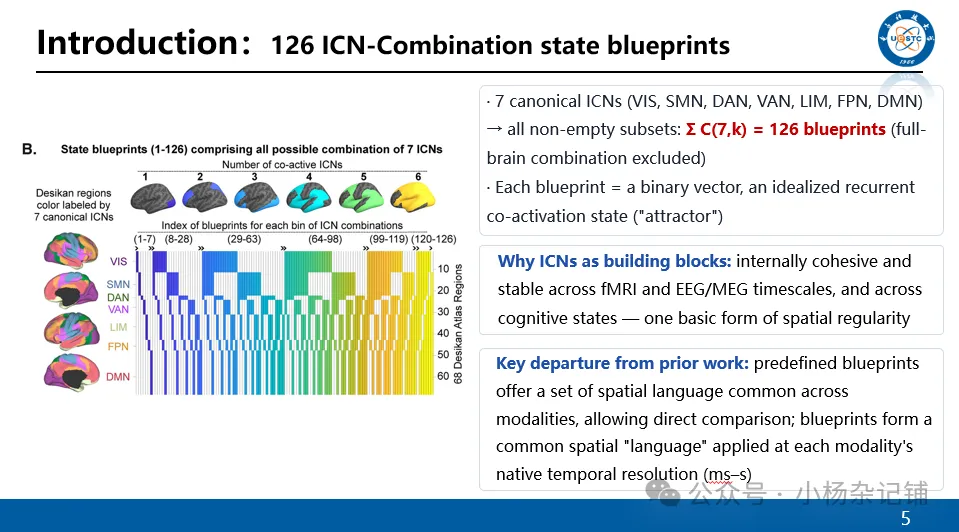
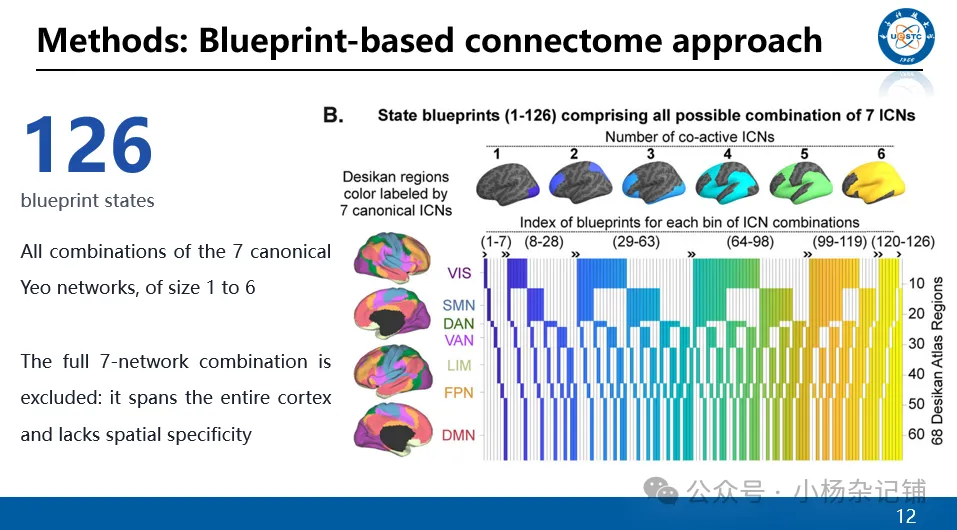
为了系统检验共享规律,作者搭建了一个组合式的状态空间,如图所示。
他们把 68 个 Desikan 脑区按 Yeo 框架归入七个经典网络:视觉、感觉运动、背侧注意、腹侧注意、边缘、额顶和默认网络。
关键点在于:他们没有把网络当作孤立单元,而是枚举了七个网络的所有非空组合,一共 126 个状态蓝图,完整覆盖全脑的组合被排除,因为没有空间特异性。
每个蓝图是一个二值向量,代表一种理想化的全脑共激活模式,可以理解为动态活动的吸引子。
这样设计的理由有三点:
一是 ICN 在快慢模态里都能稳定观察到,是天然的空间规律单元;蓝图枚举是完备的、事先定义好的;
二是与 HMM、ICA 等数据驱动方法不同,预定义蓝图提供了一套跨模态通用的空间语言,可以做直接比较;
三是蓝图在各自模态的原生时间分辨率上拟合,从而能同时覆盖毫秒级和秒级的动态。
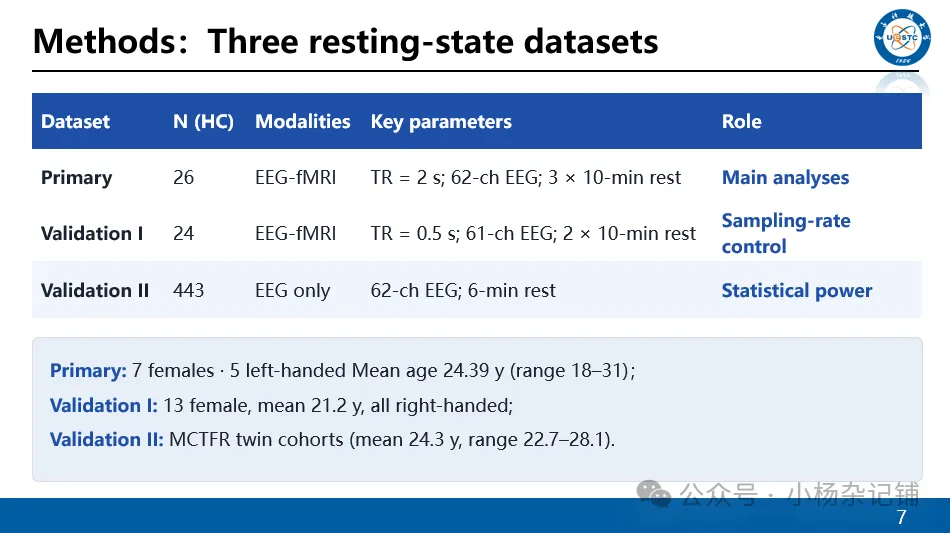
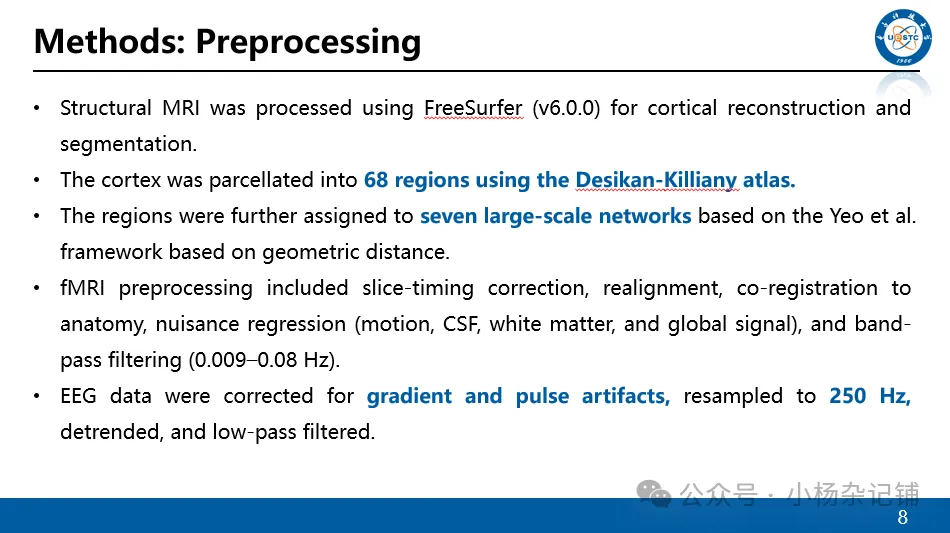
结构 MRI 使用 FreeSurfer(v6.0.0)进行皮层重建与分割处理。
使用 Desikan-Killiany 图谱将皮层划分为 68 个脑区,与既往研究一致。
这些脑区进一步依据几何距离,按照 Yeo 等人的网络划分框架(48)归入七个大规模网络。
fMRI 预处理包括层间时间校正、头动校正(重对齐)、与解剖像配准、干扰信号回归(头动、脑脊液、白质和全脑信号)以及带通滤波(0.009–0.08 Hz)。
EEG 数据经梯度伪迹与脉搏伪迹校正、重采样至 250 Hz、去趋势和低通滤波。
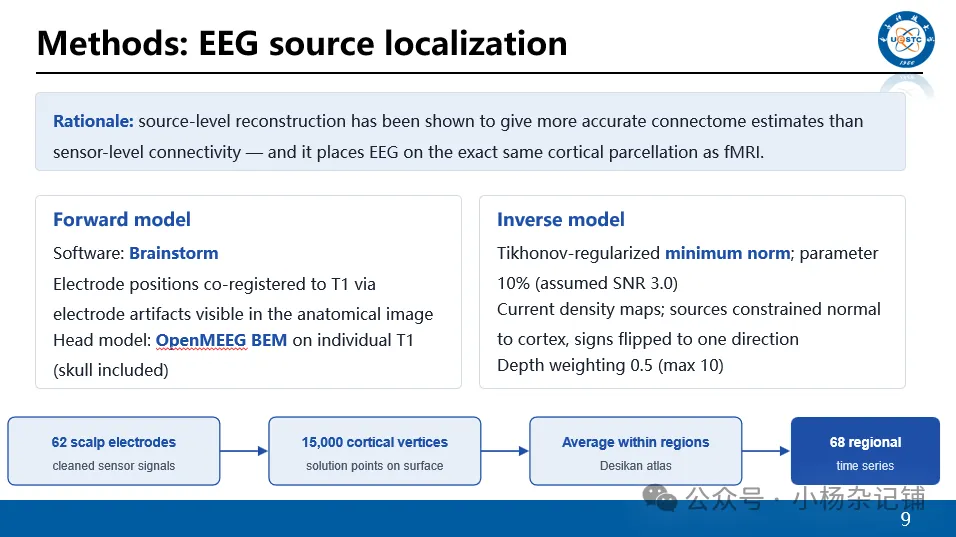
随后使用 Brainstorm 软件对清理后的 EEG 传感器数据进行源定位。已证明该程序相比传感器水平的连接性分析能够提供更精确的连接组重建——并且它使EEG与fMRI落在完全相同的皮层分区上。
通过将电极位置手动对齐至 T1 图像中可见的电极伪迹,实现电极位置与 T1 图像的配准。
使用 OpenMEEG BEM 模型(11, 12),基于每个被试的个体 T1 图像计算颅骨前向模型。BEM 解决已知源活动时如何计算头皮电位的问题;Inverse solution 解决已知头皮电位时如何估计大脑内部源活动的问题。BEM 本身并没有完成源定位,它只是为后续逆向计算提供基础。
使用 Tikhonov 正则化最小范数(13)(Tikhonov 参数设为 10%)将 EEG 信号投影到源空间(皮层表面上的 15,000 个解点)(默认参数:假定 SNR 比 3.0,使用电流密度图,约束源垂直于皮层并将符号翻转至同一方向,深度加权 0.5/最大值 10)。
所有解点的源活动在 Desikan 图谱的每个皮层脑区内进行平均。
Tikhonov parameter = 10%,作者设置 Tikhonov 正则化参数为 10%,用于控制逆问题的正则化程度。其基本思想是:在能够较好解释头皮 EEG 电位的前提下,寻找整体源强度尽可能小的解。
Assumed SNR ratio = 3.0,SNR 即信噪比(Signal-to-Noise Ratio)。作者假定信号与噪声的比例为 3.0。这一参数用于逆向估计时对噪声水平的假设,影响数据拟合与正则化之间的权衡。
Depth weighting = 0.5,这是另一个非常重要的参数。为什么需要 Depth weighting?因为 EEG 源定位存在深度偏倚:距离头皮较近的皮层源通常更容易在头皮电极上产生较明显的电位,而深部源产生的头皮电位往往相对较弱。如果直接使用普通 Minimum Norm,估计结果可能偏向浅表源。Depth weighting 的作用就是对不同深度的源进行补偿,减轻这种深度偏倚。文献设置 depth weighting 为 0.5,最大权重调整量为 10。
在 EEG 源定位中,通常将神经源建模为电流偶极子(Current Dipole)。每个源点包含三方面信息:空间位置、电流源方向、随时间变化的源强度。
正向模型回答的是“源如何变成头皮电位”,只有它足够准确,逆向求解才有意义。
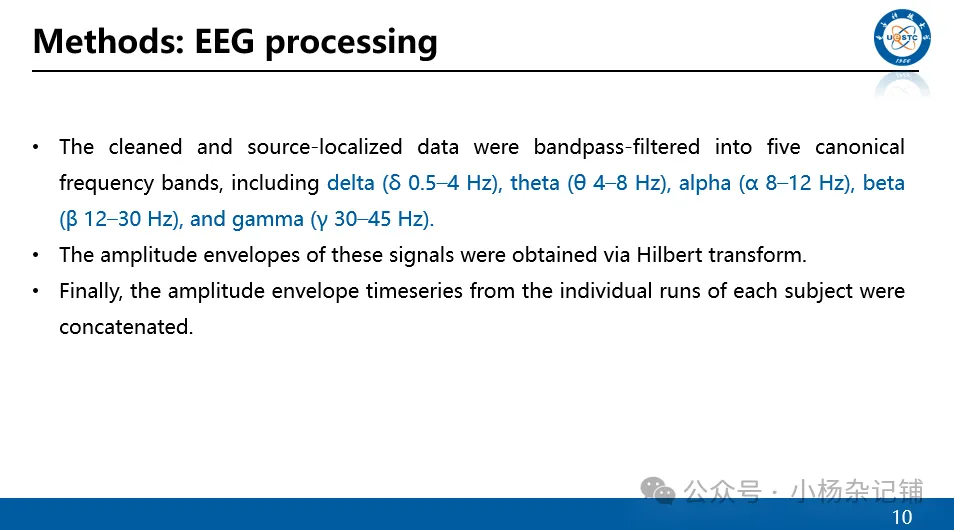
将清理并完成源定位的数据带通滤波至五个典型频段,包括 delta(δ 0.5–4 Hz)、theta(θ 4–8 Hz)、alpha(α 8–12 Hz)、beta(β 12–30 Hz)和 gamma(γ 30–45 Hz)。
通过希尔伯特变换获得这些信号的幅值包络。
最后,将每个被试各次run的幅值包络时间序列拼接起来。
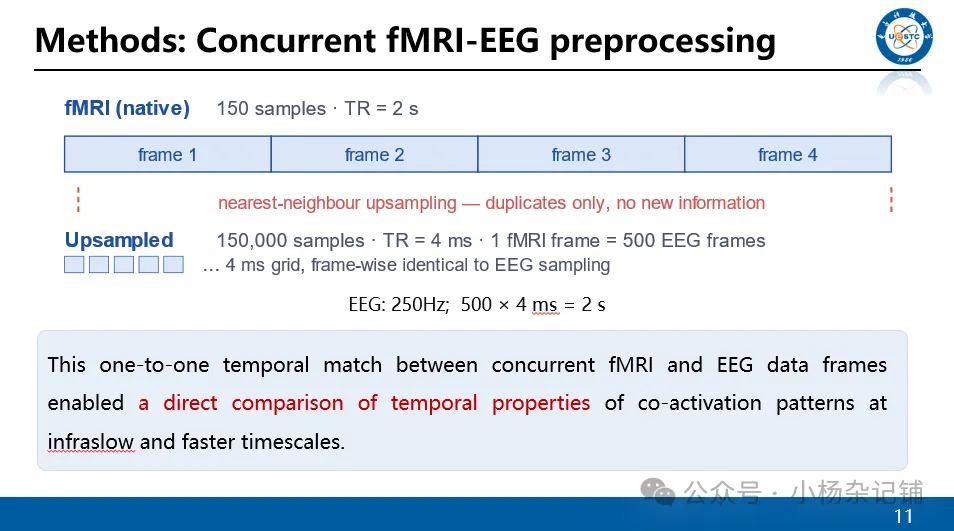
为了实现逐帧的直接比较,fMRI 数据被上采样以匹配 EEG 数据的样本数。
具体而言,fMRI 数据最初在 TR = 2 sec 时包含 150 个样本,被上采样至 TR = 4 ms 时的 150,000 个样本。
重要的是,最近邻插值并未引入新信息,而是插入了已有数据的重复副本。
因此,每个原始 fMRI 共激活帧最初在 0.5 Hz 下跨越 2 秒,被以 250 Hz 重采样为 500 帧,与EEG同帧对齐。
因此,fMRI 中共激活模式的最短持续时间为 500 个样本,即 2 sec。
同步采集的 fMRI 和 EEG 数据帧之间的这种一对一时间匹配,使得能够在极慢和更快的时间尺度上直接比较共激活模式的时间特性。
介绍部分已经讲解过
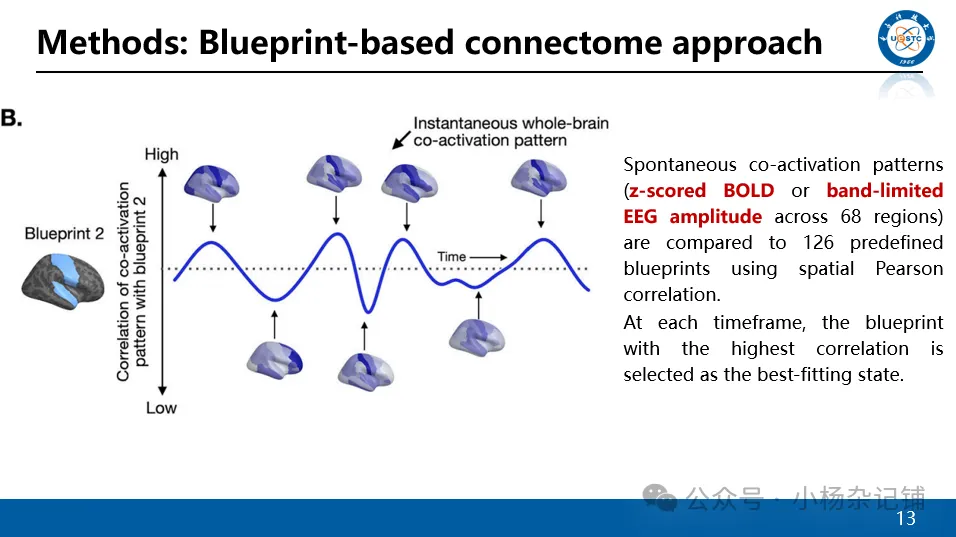
为了识别在每个时间帧上最能捕获脑活动空间组织的蓝图,我们计算了每个蓝图与瞬时全脑共激活模式之间的皮尔逊相关(图 2B)。
这些共激活模式在 fMRI 中源自经 z 分数标准化的 BOLD 信号,在源定位脑电(EEG)中则源自带限幅值包络。
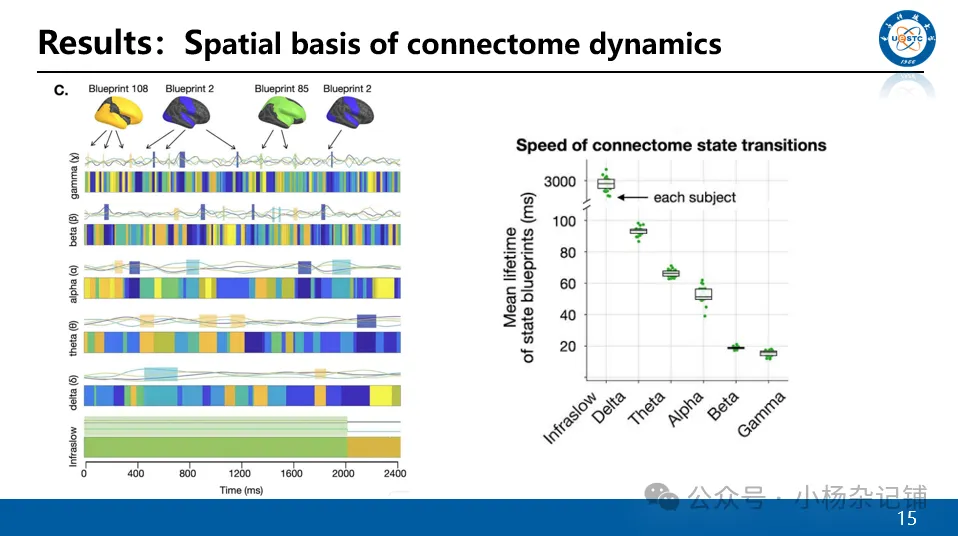
在每个时间帧上,空间相关最高的蓝图被选为最佳拟合状态,从而为每个神经活动时间尺度产生一个随时间分辨的离散蓝图标签序列(图 2C)。
如图 2C–D 所示,蓝图状态序列揭示了不同时间尺度之间在转移速度上的显著差异。
状态蓝图的平均停留时间从快的神经活动时间尺度到慢的神经活动时间尺度系统性地增加,在最快的 EEG 频段上平均持续时间约为 20 ms,在 fMRI 中约为 3000 ms,跨越了三个以上的数量级。
这些序列直接可视化了大尺度脑动态:慢的频段里状态持续很久,快的频段里切换频繁。
(C) 各神经时间尺度下的蓝图状态序列。
对每个时间尺度,上方面板显示四个示例蓝图与经验共激活模式在 2.8 s 窗口内的相关时间序列。
彩色方框表示每个蓝图处于最佳拟合状态的时间段。
下方面板显示最佳拟合蓝图的完整序列(1–126,着色方式如 Fig. 1B),展示了在更慢的神经时间尺度上状态转移逐渐变慢。
(D) 连接组状态转移的速度。
蓝图状态的平均寿命(对每名被试的 126 个状态取平均)从约 20 ms 系统性地增加至约 3000 ms。
这些寿命与区域幅值包络的速度紧密一致,并与典型频段的中心频率相关(1A 中的橙色与蓝色)。
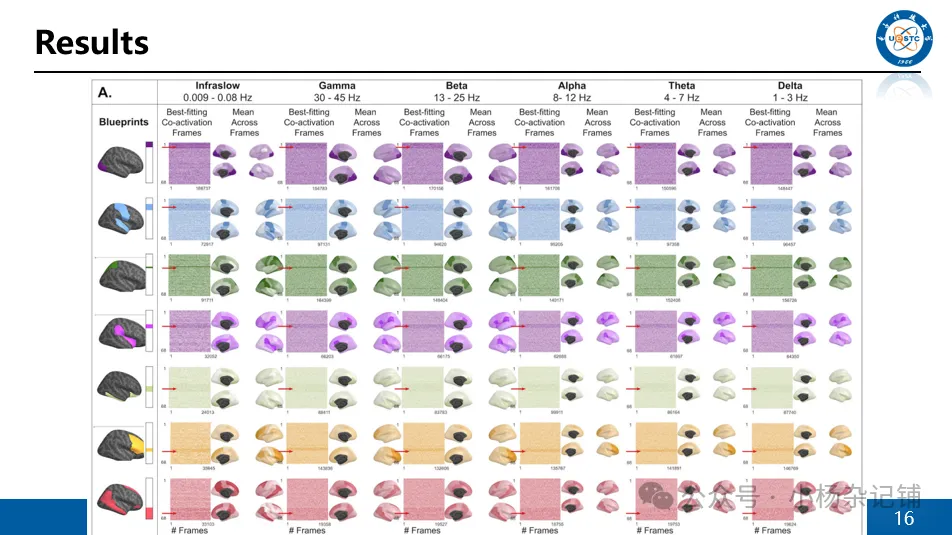
图 3A 表明,蓝图状态与各个时间尺度上的经验全脑共激活模式颇为相似。
在每个时间尺度上,被分配给某一给定蓝图的时间帧所表现出的平均空间模式与该蓝图相匹配;
若最佳拟合蓝图确实解释了这些共激活,这正是预期会出现的结果。
支配各神经时间尺度上共激活模式的空间原则
(A) 状态蓝图对共激活模式的经验拟合。
最左侧:蓝图 1–7,每个代表单个 ICN(着色方式如 Fig. 1B)。
对每个神经时间尺度(从左到右),地毯图显示了跨 68 个 Desikan 区域(行)的经 z 分数变换的活动,以及跨被试识别出给定蓝图为最佳拟合的所有时间帧(流程见 Fig. 2C)。
颜色越深表示活动越高。
活动升高的水平条带(红色箭头)与相应蓝图中处于活动的 ICN 对齐。
每个地毯图右侧:这些时间帧上的平均共激活模式与相应蓝图高度相似,证实了跨时间尺度一致的空间表达。
用于检验空间原则的零模型
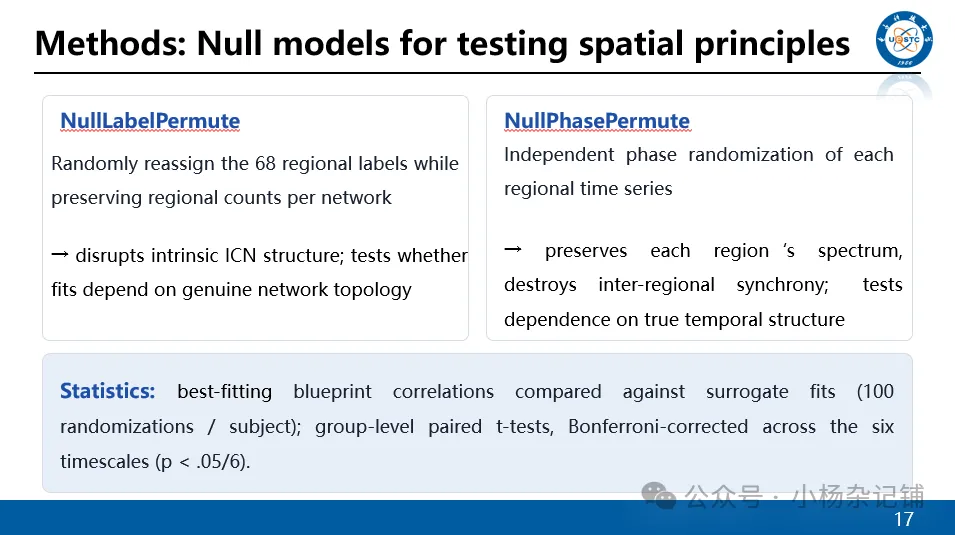
为评估蓝图拟合的有效性,我们将其表现与两个零模型进行了比较。
第一个叫NullLabelPermute:把68个区的标签随机重排,保持每个网络的区域数量不变,但破坏网络本身的空间结构——如果拟合靠的是真正的网络组织,打乱后应该掉下去。
第二个叫NullPhasePermute:对每个区域的时间序列独立做相位随机化,保持每个区的功率谱不变,但破坏区域之间的时间同步——它检验拟合是否依赖真实的区域间相位关系。
每个零模型生成100次替代数据,把真实最佳拟合相关和替代数据的拟合比较,组水平用配对t检验,六个时间尺度做Bonferroni校正,p小于0.05除以6
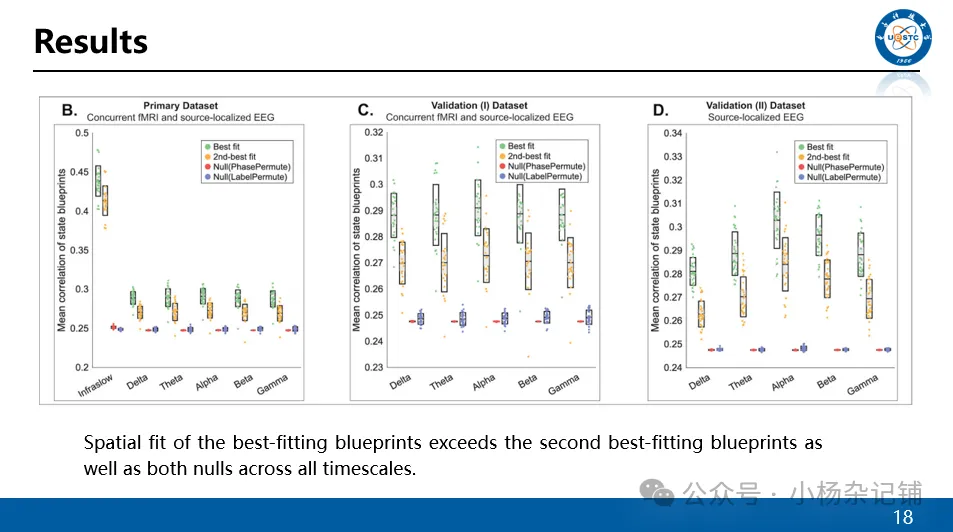
在所有时间尺度上,最佳拟合蓝图的空间拟合均超过次佳拟合蓝图以及两个零模型。
这些效应在一个独立的同步 EEG-fMRI 数据集和一个大规模仅 EEG 数据集中均得到重复,二者均处于静息态。
值得注意的是,鉴于蓝图空间的组合特性,排名靠前的候选之间存在一定程度的空间相似性是意料之中的:许多蓝图之间仅相差一个或两个 ICN 的纳入或排除。
(B) 蓝图拟合的统计验证。
对每名被试,箱线图显示经验共激活模式与其最佳拟合和次佳拟合蓝图之间的平均空间相关。
箱线图表示中位数、四分位距 (IQR) 以及延伸至 1.5×IQR 的须;单个离群值也被绘制出来。
经验拟合(绿色)与两个零模型进行比较:空间打乱的蓝图(NullLabelPermute;红色)和相位随机化的区域时间序列(NullPhasePermute;紫色)。
在所有时间尺度上,最佳拟合蓝图的空间拟合均超过次佳拟合蓝图以及两个零模型。
(C-D) 在独立数据集上的可重复性验证。
相对于两个零模型更优的蓝图拟合,在独立的同步 EEG-fMRI 数据集 (C) 以及大规模纯 EEG 数据集 (D) 中均得到重复。
有了蓝图状态序列,就可以量化时间动态。
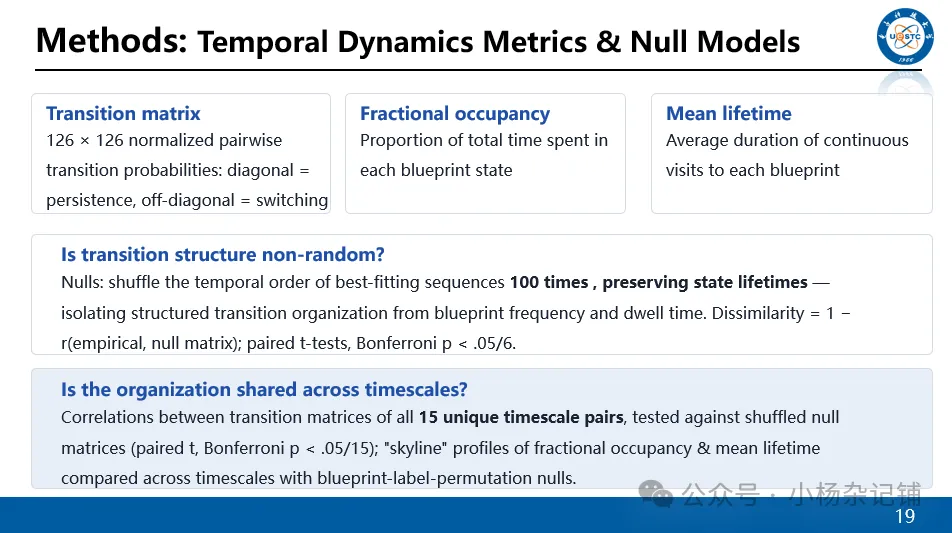
三个指标。第一,转移概率矩阵,126乘126,对角线元素是状态保持的概率,非对角线是状态切换的概率;
第二,时间占比,每个蓝图状态占总时间的比例;
第三,平均停留时间,每次连续访问一个蓝图的平均持续时长。
这三个指标一起,把六个时间尺度上蓝图之间的动态做了紧凑的刻画。
关键问题是:这些转移结构是不是非随机的?零模型的做法是打乱最佳拟合状态的时序顺序,但保留每个状态的时间占比——这样替代序列的状态频率和停留时间跟真实数据一样,唯独转移组织被打乱,从而把结构化转移的贡献从频率因素里剥离出来。经验转移矩阵与零模型的相异性用1减相关来量化,组水平配对t检验,六个尺度Bonferroni校正。
再进一步,把15对时间尺度组合的转移矩阵两两求相关,与打乱后的零矩阵比较,检验这种非随机的转移组织是否跨尺度共享,对 15 次比较进行 Bonferroni 校正,p < 0.05/15。时间占比和平均停留时间的分布也用同样思路跨尺度比较。
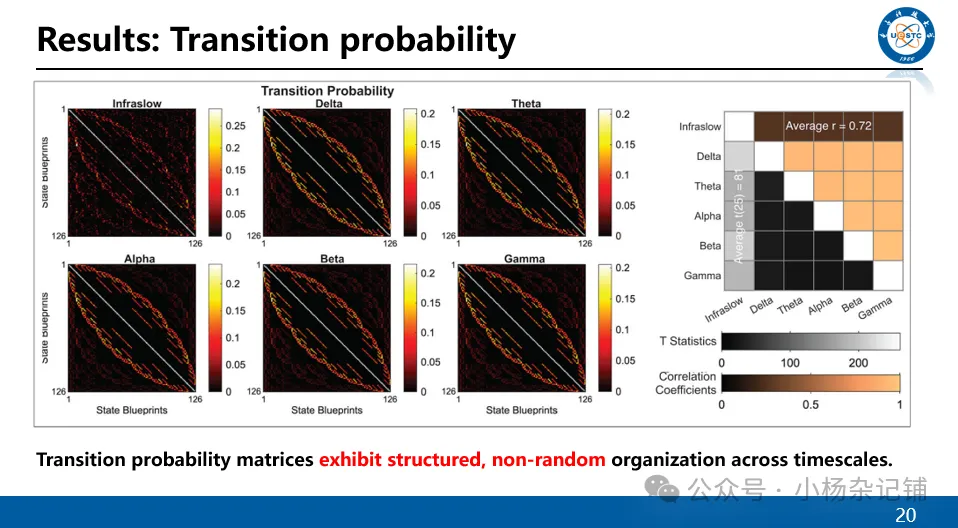
转移概率矩阵在各个时间尺度上都表现出有结构的、非随机的组织方式(图 4A,左)。
值得注意的是,转移概率矩阵的一个显著特征是尖角椭圆形的图案(图 4A 中浅黄色部分),反映出在空间相似的蓝图之间存在强烈的转移倾向。
相对于零模型转移矩阵(通过将最佳拟合蓝图状态的时间次序重排 100 次、同时保持占用率不变而生成),观测到的转移概率矩阵与零模型之间的差异显著大于随机预期,表明状态转移中存在一致的时间规律性。
我们随后追问,这一非随机的转移结构是否在各个时间尺度之间共享。
来自所有时间尺度配对(共 15 对)的转移概率矩阵之间的被试内空间相关性显示出高度相似性(图 4A,右),其中极慢(infraslow)时间尺度与较快时间尺度之间的相关性为 r = 0.62–0.67,各 EEG 频段之间的相关性为 r = 0.90–0.96。
这些实际观测到的相关性显著大于由重排序列所得到的相关性(t(25) 范围:175–330,所有 p < .05/15),表明蓝图转移的时间组织反映了连接组动力学的一条跨时间尺度的原则。
蓝图状态序列在各神经时间尺度上的时间原则
(A) 各时间尺度上的状态转移概率。
左侧:六个神经时间尺度各自的代表性转移概率矩阵 (126 × 126),显示从一个蓝图(行)转移到另一个蓝图(列)的可能性。
对角占优、尖椭圆形的结构表明状态更倾向于在空间上相似的状态之间转移(见 SI 3.1.2)。
整体的对称性反映了前 63 个与后 63 个蓝图之间镜像的空间结构(cf. Fig. 1B)。
尽管绝对转移值随状态寿命而变化(cf. Fig. 1D),相对转移结构在各时间尺度间得以保持(见 SI 3.1.3)。
极慢矩阵采用不同的色标以适配其更长的寿命。
右侧:转移矩阵的跨时间尺度相似性。
上三角(黑色到铜色)显示两两皮尔逊相关;下三角(黑色到白色)显示将经验矩阵与零模型比较的 t 统计量。
文章进一步研究了状态转移时的网络重组规模:每个蓝图表示成7元素二值向量,对应七个典型 ICN 的激活状态(1 = 激活,0 = 非激活)。
转移规模就是相邻两个状态之间激活状态改变的数目,1到7。
例如,从蓝图 8[1 1 0 0 0 0 0](涉及视觉网络与运动网络)转移到蓝图 9[1 0 1 0 0 0 0](涉及视觉网络与背侧注意网络)时,得到的差向量为[0, 1, −1, 0, 0, 0, 0]。取绝对值并对各元素求和,得到转移规模为 2,表明有两个 ICN 改变了激活状态(运动网络失活;背侧注意网络激活)。
转移规模分布在六个尺度间比较,检验转移结构是否跨尺度守恒。
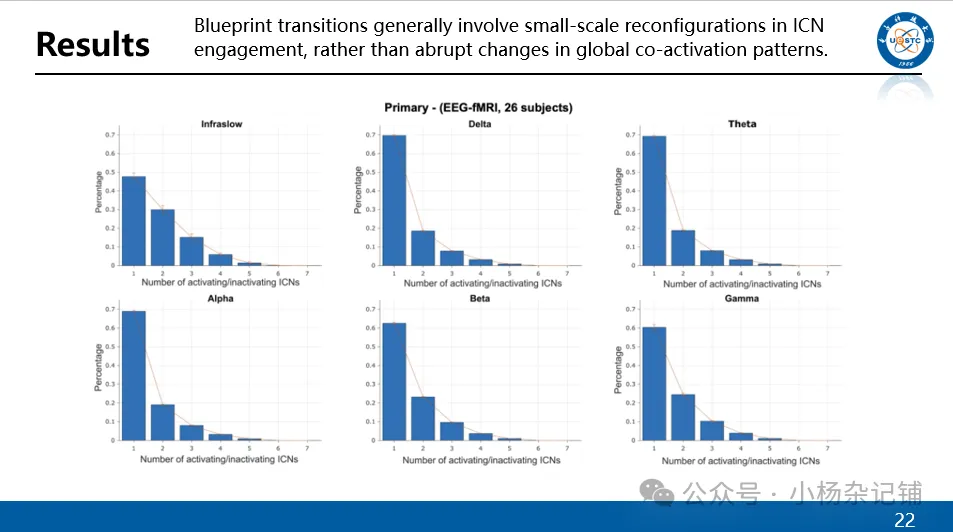
在全部六个时间尺度上,这些转移幅度的分布高度一致。
大多数转移(约 87%)仅涉及一或两个 ICN 激活状态的改变。
在各个时间尺度上,约 70% 的转移发生在仅相差一个 ICN 的蓝图之间,而差异更大的蓝图之间的转移则占较小(约 10%)但不可忽略的比例(见 SI 3.1.2)。
涉及三个及以上 ICN 的较大变化很少发生。
这些发现表明,蓝图转移通常涉及 ICN 参与的小规模重组,而非全局共激活模式的突然改变。
换言之,最佳拟合蓝图序列主要由空间上相近的蓝图之间的转移构成,偶尔“跳跃”到更远(即空间上不相似)的相关蓝图族群。
状态转移偏向空间连续性,但偶尔也会跳转到高度不相似的状态,从而高效地覆盖由 ICN 组合所组成的完整组合状态空间。
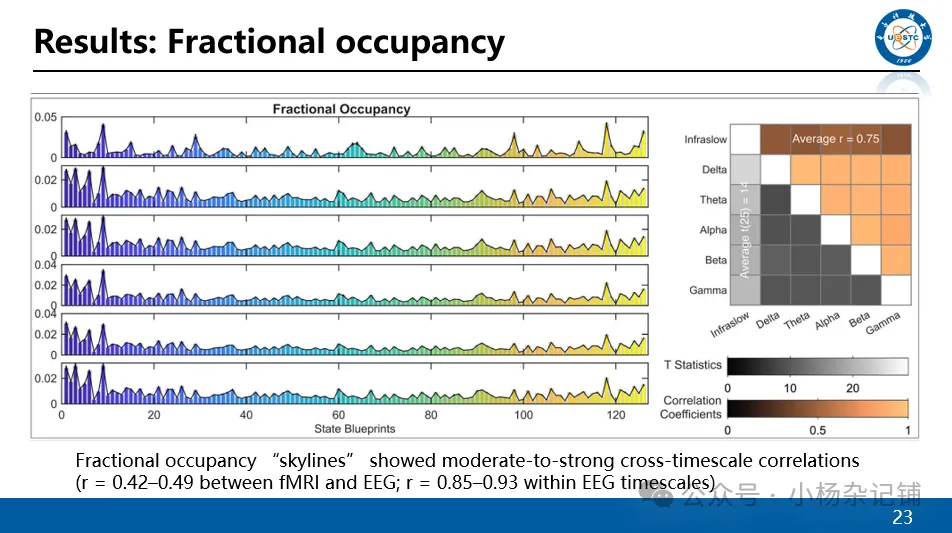
各个蓝图之间时间占比和平均寿命的分布在各个时间尺度上都得以保持(图 4B–C,左)。
时间占比的分布轮廓“天际线”显示出中等到强的跨时间尺度相关性(fMRI 与 EEG 之间为 r = 0.42–0.49;EEG 各时间尺度内部为 r = 0.85–0.93),均超过零模型预期(t(25) 范围:8–24,所有 p < .05/15;图 4B,右)。
得以保持的“天际线”结构强化了这样一种观点:存在一个横跨各神经活动时间尺度的共同组织骨架。
值得注意的是,由单个 ICN 构成的蓝图(蓝图 1–7)在总时间占比中只占很小(约 12.2%)且比例稳定的一部分
(B-C) 蓝图表达中的跨时间尺度规律。
(B) 所有 126 个状态与时间尺度上的时间占比(着色方式如 Fig. 1B),揭示了保守的“天际线”结构。
六条竖直虚线标记了每个 ICN 数量分组内时间占比最大的代表性蓝图(即具有 1、2、… 个活动 ICN 的蓝图)。
如这些虚线所示,当某个蓝图在记录中占据特别大的比例时,其互补蓝图(即 ICN 活动/非活动集合相反的那个蓝图)往往也如此。
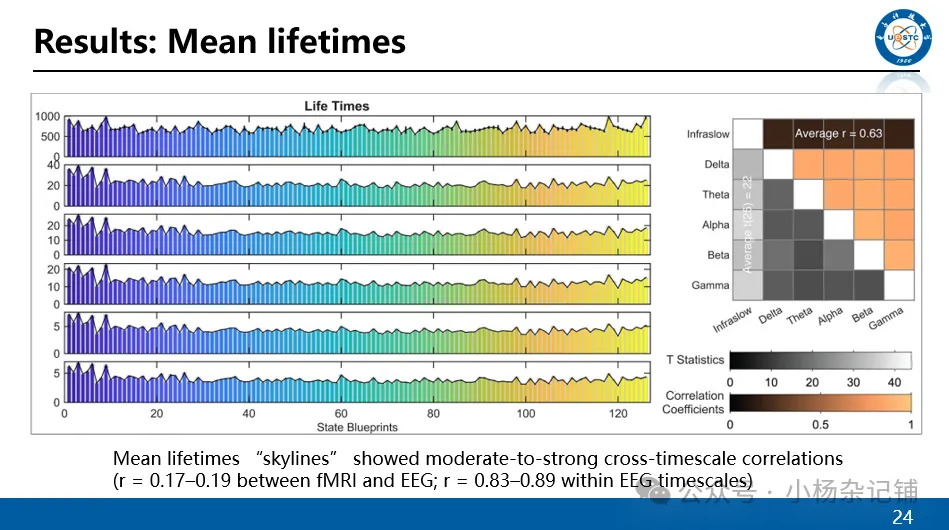
平均寿命也观察到类似结果:fMRI 与 EEG 之间为 r = 0.17–0.19,EEG 各时间尺度内部为 r = 0.83–0.89(t(25) 范围:13–37,所有 p < .05/15;图 4C,右)。
值得注意的是,极慢与较快时间尺度之间的相关性较弱,这可能是由于 fMRI 中由较慢的切换动力学所导致的蓝图采样有限。
综合来看,这些发现表明,以转移概率、时间占比和平均停留时间为指标的连接组状态序列,受一条跨时间尺度原则的支配,该原则可推广到不同的记录模态和时间分辨率。
(C) 每个蓝图的平均寿命(跨被试 ±1 个标准差)。
这两种指标在蓝图之间均表现出独特且非随机的模式。
最右侧的矩阵量化了“天际线”的跨时间尺度相似性,其中上三角为相关系数,下三角为相对于零模型的 t 统计量。
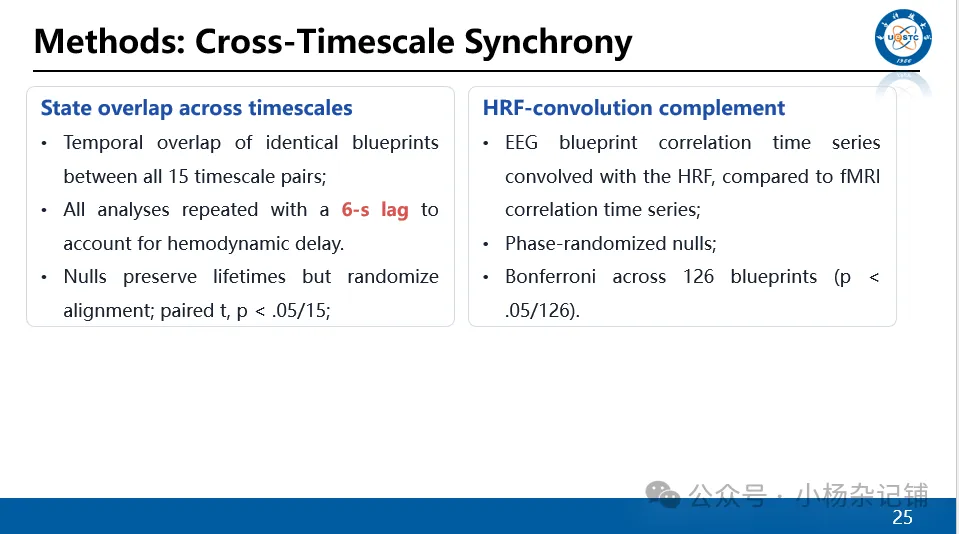
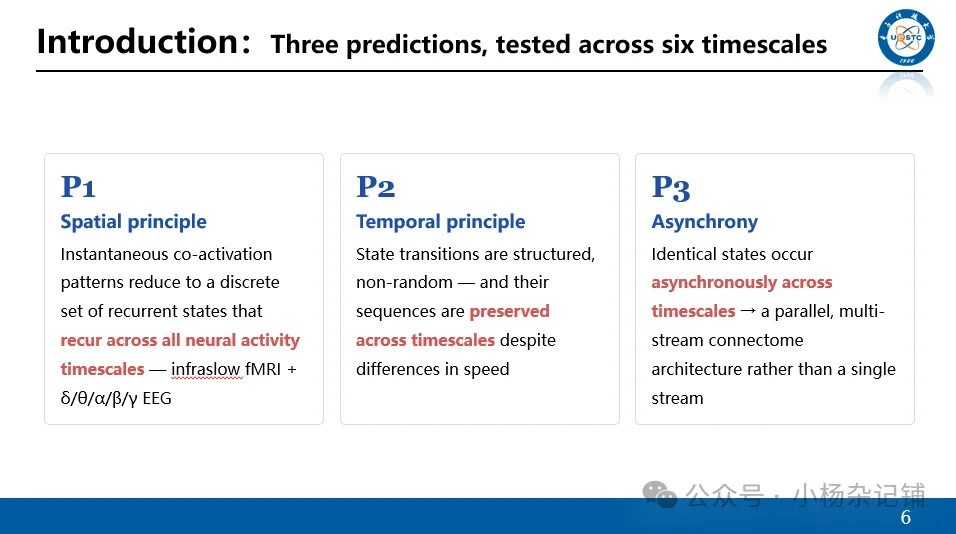
评估了相同的蓝图状态是倾向于在各时间尺度上共同出现(同步),还是在不同时间出现(异步)。
异步的证据将支持存在多条独立演化的连接组动力学流。
对于每个蓝图和每名被试,我们计算了它在六个时间尺度的全部 15 个唯一配对中同时出现的时间帧数量。
在比较极慢 fMRI 与更快的 EEG 时间尺度时,为解释血流动力学延迟,施加了 6 秒的滞后。
作为零模型,我们在保留平均停留时间的前提下对每名被试的蓝图序列随机化 1,000 次,并在每次迭代上重复重叠分析。
群体水平的配对 t 检验将观察到的重叠与零分布进行比较。
为了进一步评估极慢 fMRI 时间尺度上的蓝图表达是否仅仅是快速 EEG 动力学在时间上平滑或降采样后的版本,我们比较了跨时间尺度的蓝图相似性时间过程。
具体而言,对于五个 EEG 时间尺度中的每一个,我们为每个蓝图计算了空间相关时间序列,反映其与进行中的全脑共激活模式逐时刻的相似性。
随后将这些时间序列与 HRF 进行卷积以校正血液动力学滞后,并与 fMRI 数据中对应蓝图的空间相关时间序列进行比较。
该分析针对全部 126 个蓝图以及六个时间尺度的全部 15 个独特组合进行。
对于每个蓝图和时间尺度组合,在 HRF 卷积的 EEG 与 fMRI 相关时间序列之间计算 Pearson 相关。
为生成零分布,HRF 卷积的 EEG 时间序列在每名被试中被相位随机化 1,000 次,并计算平均替代相关。
使用组水平双尾配对 t 检验比较经验相关与替代相关(每个条件 26 个值),并在全部 126 个蓝图上进行校正(p < 0.05/126)。
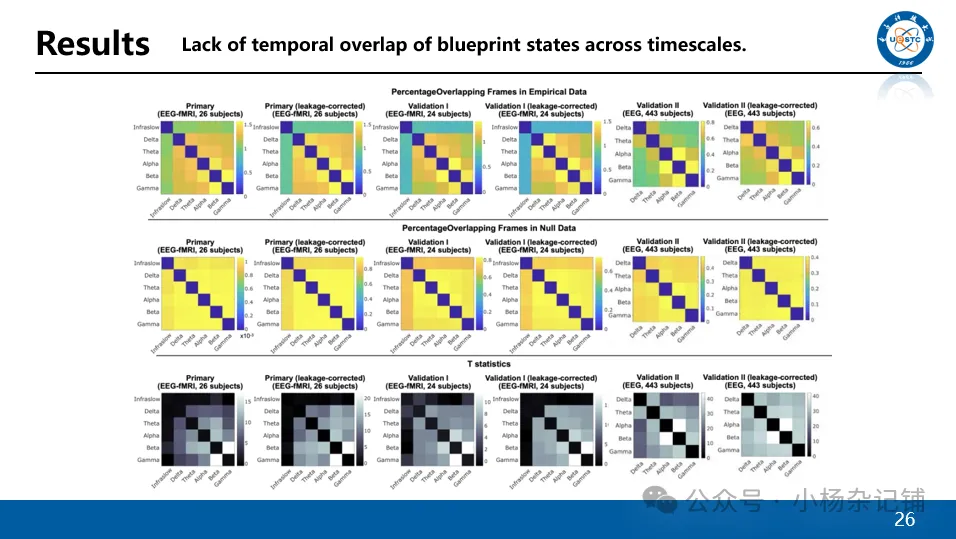
结果显示,极慢时间尺度与任何 EEG 时间尺度之间均无显著重叠(Bonferroni 校正 p > 0.05/15)。
EEG 各时间尺度之间的时间重叠同样极小,平均不足时间帧的 1.5%
这些发现表明不同时间尺度上的蓝图序列是异步展开的,即使按血流动力学延迟进行缩放校正后也是如此。
图 S7. 蓝图状态在各时间尺度间缺乏时间重叠。在每个数据集中,比较经验数据与零模型数据中同一蓝图在两个不同时间尺度上处于激活状态的重叠时间窗数量所得的 T 统计量和 Bonferroni 校正 p 值。在每个数据集中,极慢与更快时间尺度的蓝图序列之间未发现显著重叠。
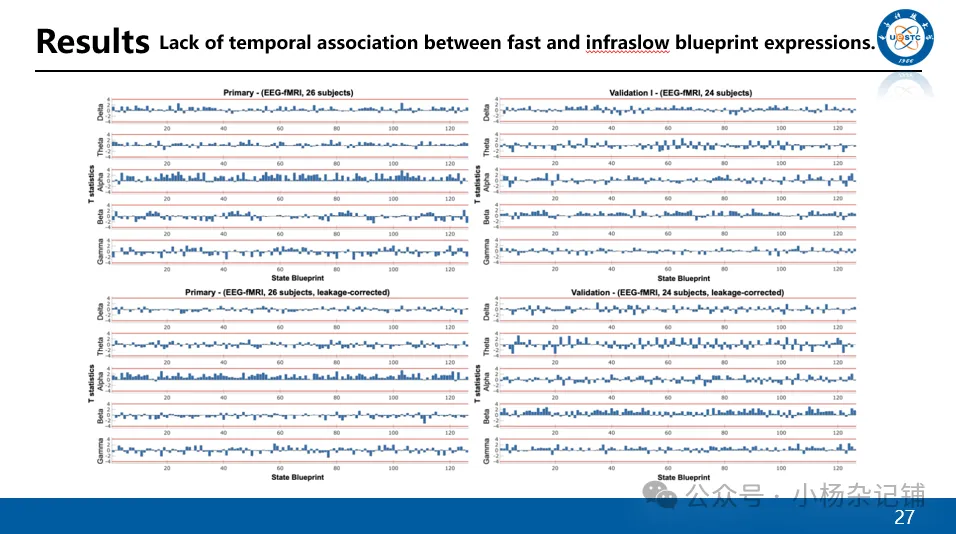
在任何蓝图上均未发现 EEG 与 fMRI 蓝图时间过程之间存在显著对应(Bonferroni 校正 p > 0.05),表明极慢与更快时间尺度上的蓝图反映的是大脑动力学在时间上相互独立、彼此自治的流,而非同一潜在信号经过滤波的变体。
这些发现支持如下观点:脑实现了多个并行的连接组动力学流,每个流以其自身的固有速度运行。
连接组动力学似乎并非形成单一的共激活状态序列,而是反映了一种时间分层的结构,从而能够在全部神经节律谱上并行处理。
Fig. S8. 快速与极慢蓝图表达之间缺乏时间关联。图中显示将每个蓝图在快速时间尺度下的空间相关时间序列与极慢时间尺度下的空间相关时间序列进行比较所得的 t 统计量(相对于随机化零分布)。红线表示统计显著性的 Bonferroni 校正阈值。结果表明,快速与极慢时间尺度的蓝图表达之间没有显著的时间关联,说明蓝图动力学在这些时间分辨率上独立展开。
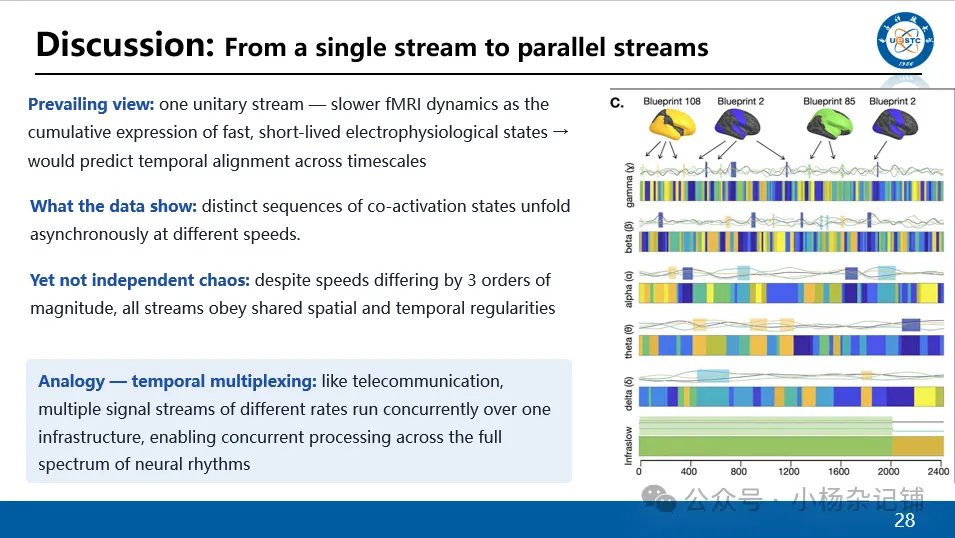
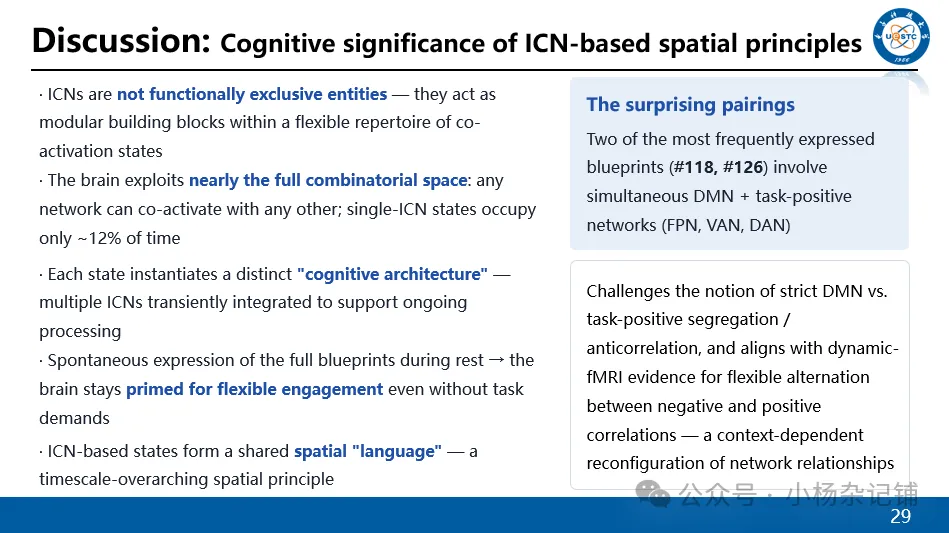
讨论第二点:空间原则的认知意义。
传统上我们把 ICN 当作彼此分离的功能单元,比如默认网络和任务正激活网络被认为互相拮抗。但这篇文章显示,大脑在静息状态下探索了七个ICN的全部空间组合——任何网络都可以和任何其他网络共激活,单网络状态只占约百分之十二的时间。
特别值得注意的是,表达频率最高的两个蓝图,118 号和 126 号,恰恰是默认模式网络同时与额顶、腹侧注意、背侧注意等多个任务正激活网络共同激活的状态。这表明网络间关系不是固定的正负相关,而是随时间灵活切换。
作者的解读是:每个状态都是一种独特的认知架构,多个网络短暂整合以支持当下的加工;静息态就表达出整套蓝图,说明大脑即使没有任务也在为灵活调度做好准备。
ICN 因此更像一套共享的空间语言,是一种跨越时间尺度的空间原则。
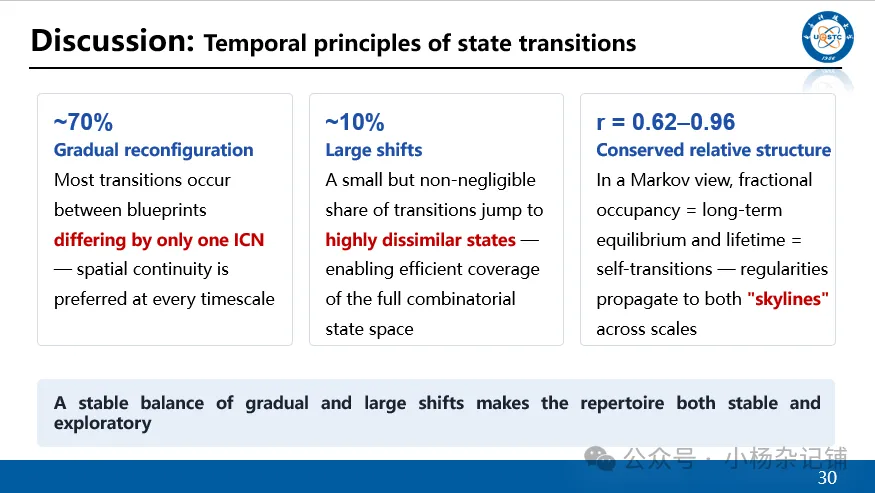
讨论第三点:时间原则。
状态转移在不同时间尺度上遵循同样结构的规则:大约七成的转移发生在只差一个网络的相邻蓝图之间,保证空间连续性和渐进式重构;
另外约一成是大跳变,直接切换到空间上非常不同的状态,这个比例虽小但不可忽略,让系统能高效探索整个组合空间。
作者还用马尔可夫框架来理解:时间占比对应系统的长期平稳分布,平均停留时间对应对角线上的自转移概率,因此转移结构的规律会自然传递到这两个高阶指标上,这正是他们观察到 skyline 跨尺度保守的原因。
总的来说,这是一个渐进为主、偶尔大跳的时间策略,兼顾了稳定性和探索性。
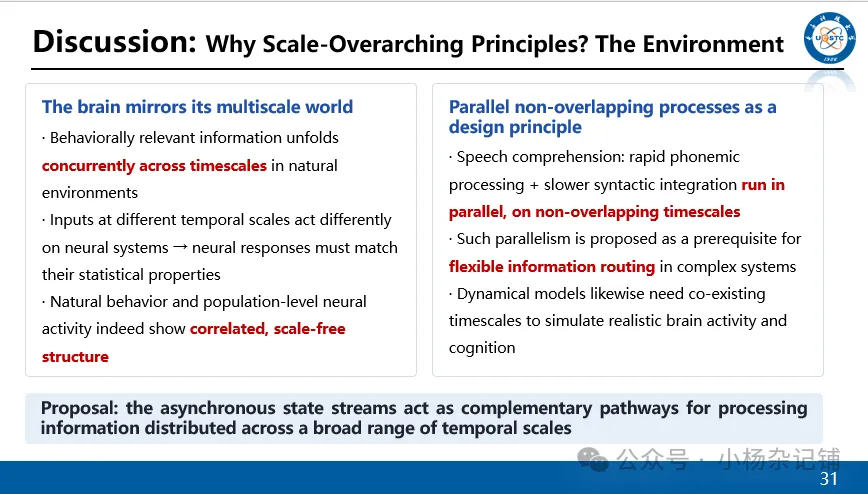
讨论第四点:为什么连接组要跨尺度地共享同一套原则?作者的回答从环境出发。
自然环境里的行为相关信息本来就是同时在多个时间尺度上展开的,而且不同时间尺度的输入对神经系统的作用方式不同,所以大脑要有效加工这些输入,就必须产生统计特性相匹配的神经响应——事实上,自然行为和群体神经活动都表现出相关的无标度结构。
回到言语理解的例子:快速的音素加工和较慢的句法整合并行运行、时间尺度互不重叠,这种并行恰恰被认为是复杂系统实现灵活信息传递的前提。从建模角度看,要让动力学模型仿真出真实的脑活动和认知,也必须有多时间尺度共存。
所以作者提出:这些异步并行的状态流是互补的通路,共同负责加工分布在宽广时间范围上的信息。
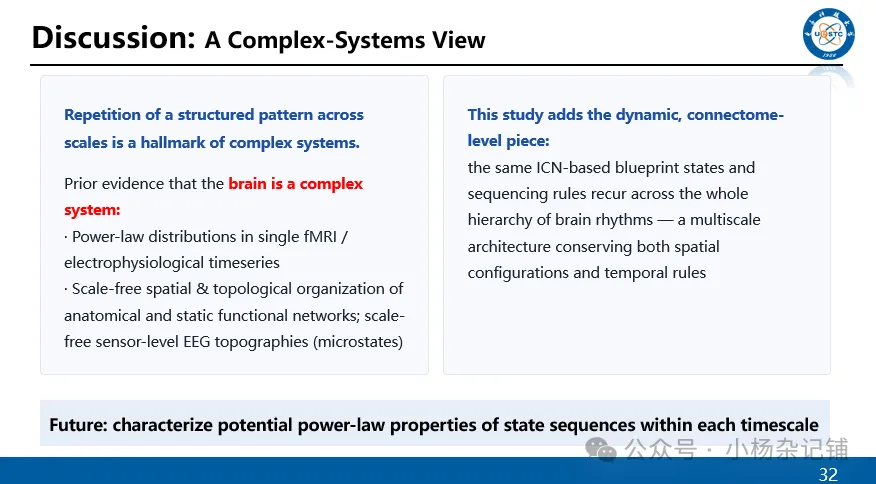
讨论第五点:把结果放到复杂系统的框架里看。同一个结构化模式在不同尺度上重复出现,是复杂系统的标志性特征
神经科学里其实已有不少证据:单条 fMRI 或电生理时间序列的幅度服从幂律分布,解剖网络和静态功能网络的空间与拓扑组织、甚至 EEG 微状态序列,都表现出尺度无关性。
这篇文章在宏观连接组动态层面补上了一环:同样的 ICN 蓝图状态、同样的转移规则,跨越整个脑节律层级重复出现——空间构型和时序原则在尺度间都是自相似的。
作者也指出一个未来方向:如果在单一尺度内部检验状态序列的幂律特征,可以进一步强化这个复杂系统的解释。
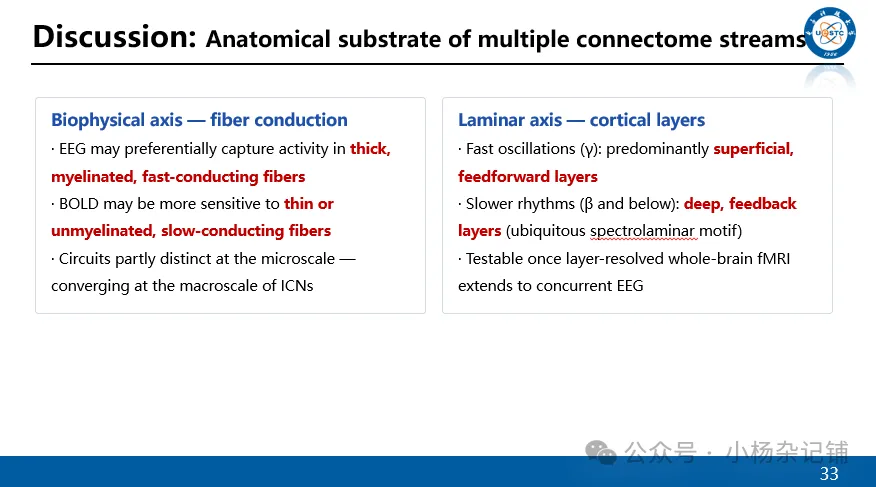
讨论第六点:这些并行流的解剖基础可能是什么
生物物理层面,电生理信号可能优先来自粗、有髓鞘、传导快的纤维,而 BOLD 对细的、无髓鞘、慢传导纤维的活动更敏感——也就是说快慢两个模态可能分别侧重微观上部分不同的神经环路,只是它们在 ICN 这个宏观尺度上汇聚。
第二个轴是皮层分层:快振荡主要出现在浅层的前馈通路,慢节律更多见于深层的反馈通路,这个谱层梯度意味着不同时间尺度的共激活模式可能源自部分不同的皮层分层;将来如果把层分辨的全脑 fMRI 扩展到同步 EEG,这个猜想就可以检验。
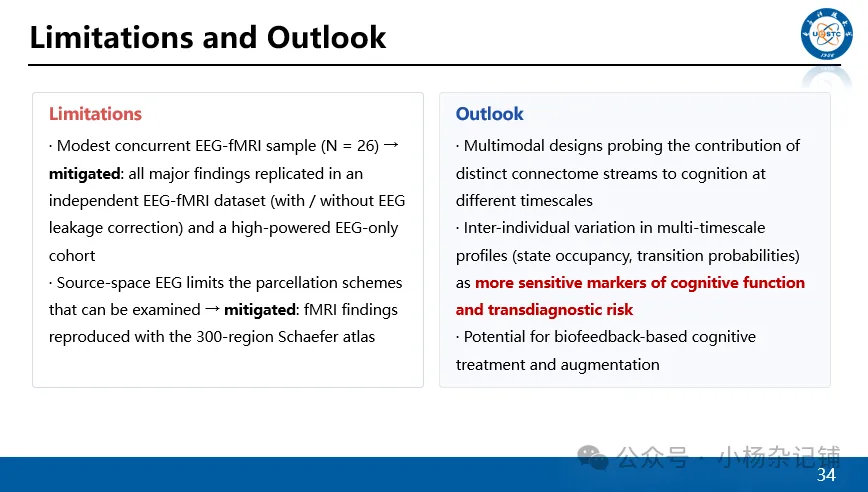
方法学上有两点局限需要说明。
第一,同步 EEG-fMRI 主数据集只有 26 人,统计功效有限;但所有主要发现都在独立数据集中复现,包括做了和不做梦电泄漏校正的版本,并用 443 人的纯 EEG 大样本佐证。
第二,EEG 源定位的空间分辨率限制了可用的脑区划分方案;不过用 300 区的 Schaefer 图谱重做 fMRI 分析,结论不变,说明结果不依赖特定的分区选择。
展望方面,作者认为这套多流框架打开了几个方向:多模态手段可以直接检验不同连接组流对不同时间尺度认知过程的贡献;个体在多尺度动态特征上的差异,比如状态时间占比或转移概率,可能比传统单一尺度的指标更敏感,可作认知功能和跨诊断风险的标记物;这些特征也有望用于认知治疗和增强的生物反馈干预。
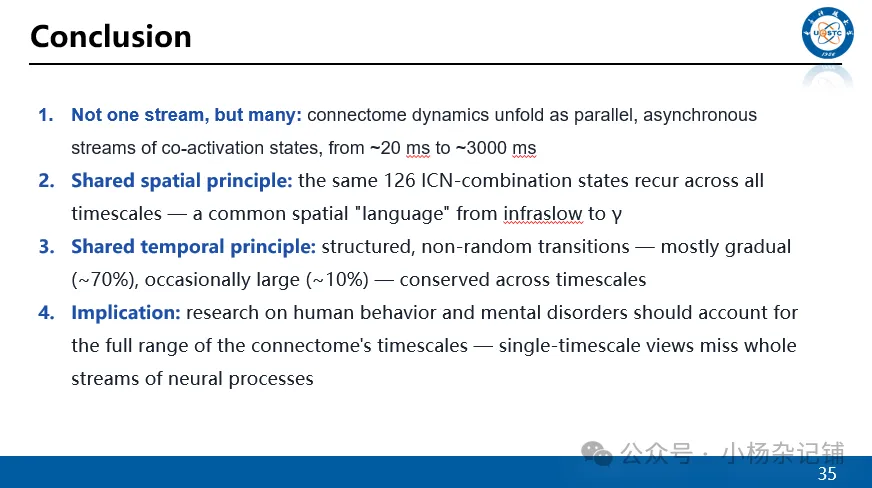
最后总结四条主要结论。
第一,连接组不是一条单一的动态流:从约 20 毫秒到约 3000 毫秒,共激活状态以各自的节奏异步并行展开
第二,空间原则跨尺度共享:七个经典网络构成的 126 个蓝图状态,在极慢 fMRI 到伽马段 EEG 里都能观察到,是快慢动态共享的一套空间词汇。
第三,时间原则同样跨尺度共享:以渐进为主、偶发大跳的转移规则,以及时间占比和平均停留时间的相对分布,在不同时间尺度上保守。
第四,方法论启示:只看某一个时间尺度的模态,会系统性遗漏其他流上的神经过程,所以研究人类行为和精神疾病时应当考虑连接组的全部时间尺度,多尺度动态特征有望成为更敏感的个体差异标记。