细胞应激研究方案设计逻辑
- 2026-11-04 11:10:58
细胞应激研究方案设计逻辑
探索生命空间,助力基础研究
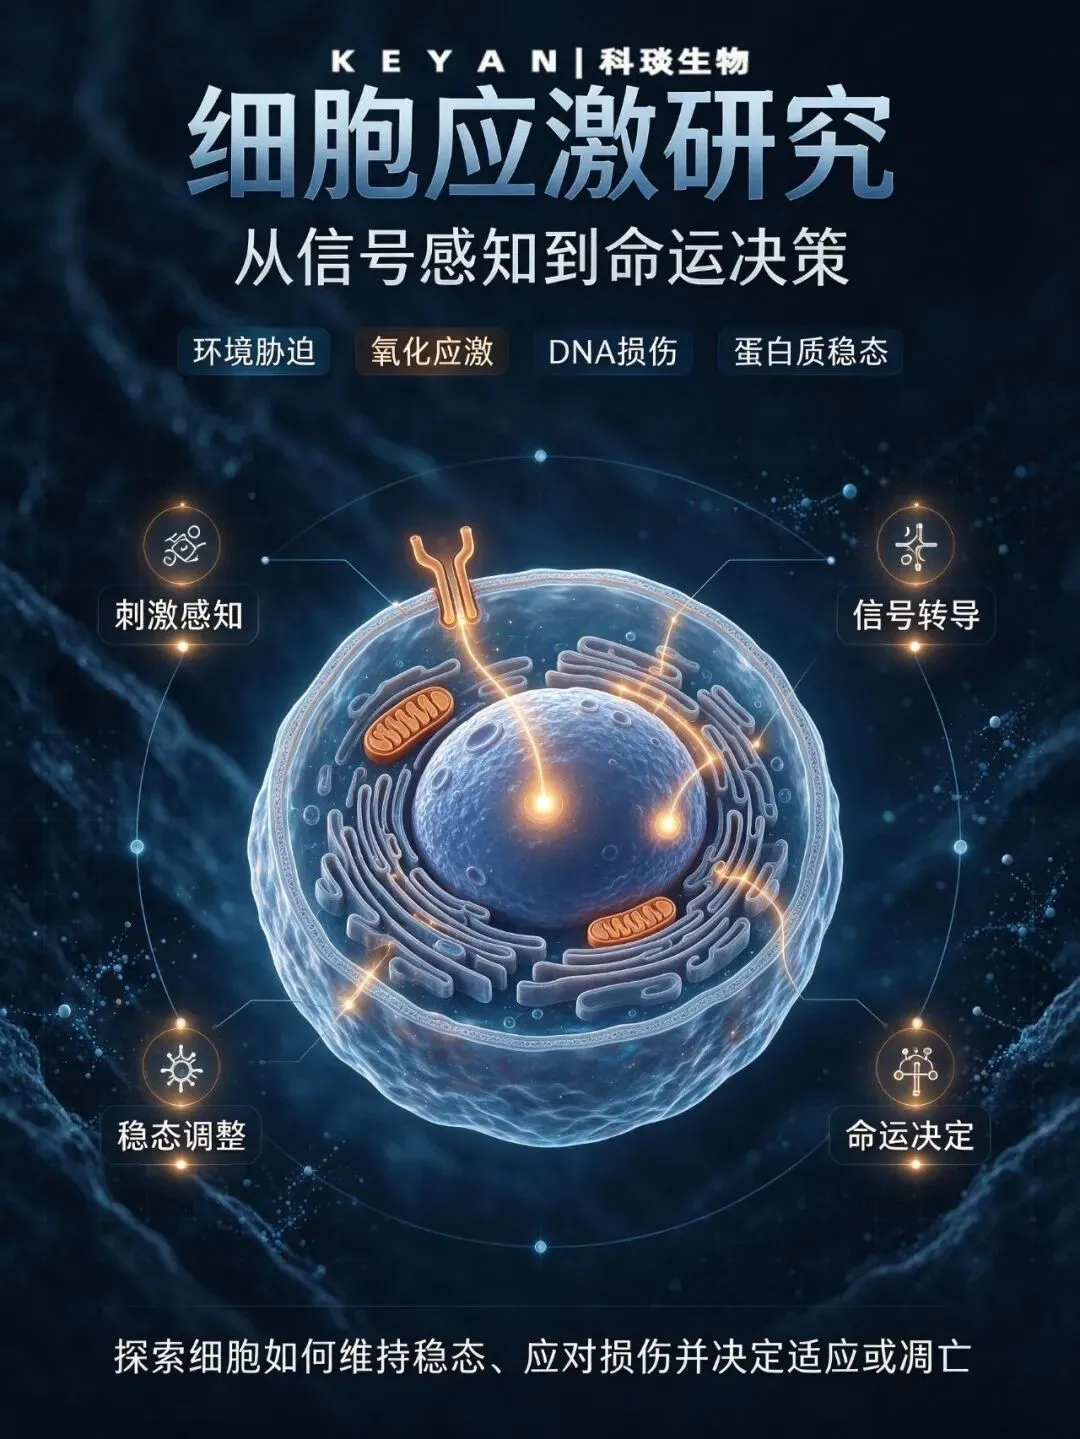
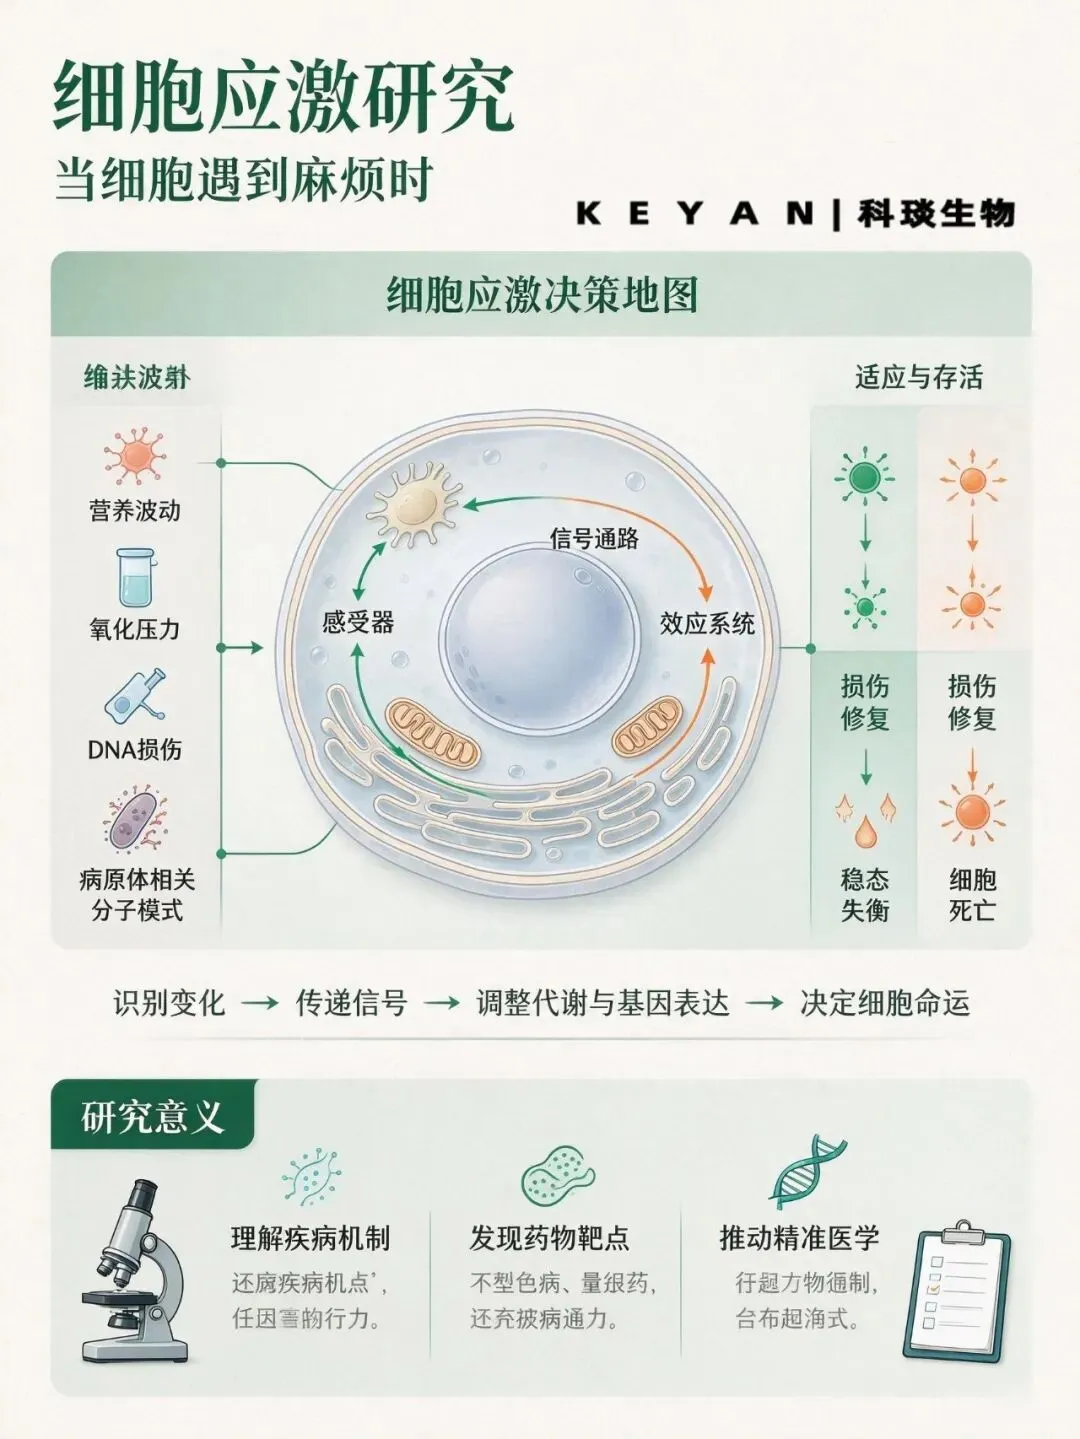
细胞应激研究关注细胞在缺氧、氧化损伤、营养限制、蛋白折叠压力、DNA 损伤、复制阻滞、细胞器损伤、机械力改变、渗透压变化和药物处理等压力下,如何感知刺激、启动适应程序,并最终走向修复、耐受、功能改变、衰老或死亡。
在实际课题中,细胞应激研究的难点不只是证明某个应激分子升高,而是要判断主导压力源是什么,最早被激活的是哪一套感应系统,细胞当前处于保护性适应还是失代偿损伤阶段,以及这些变化是否真正解释增殖、迁移、分化、炎症、死亡、耐药、免疫反应或组织病理改变。
1、先明确应激是研究对象,还是表型背景
有些项目的核心就是研究应激通路,例如 ER stress 如何驱动细胞死亡;有些项目中,应激只是解释药物处理、缺氧、炎症、纤维化或耐药的背景机制。两类项目设计深度不同。
如果应激是研究对象,需要完整证明压力来源、感应器、下游程序和功能后果;如果应激只是背景机制,可以围绕最关键的感应轴和功能结果做补强。
2、先做剂量和时间梯度
细胞应激强烈依赖处理强度和时间。低剂量可能诱导适应,高剂量可能引发失代偿;短时间可见通路激活,长时间则可能出现细胞死亡或继发损伤。单一终点检测容易错过早期感应事件,也容易把晚期死亡结果误读为主导应激机制。
建议多数项目设置早期、中期和晚期时间点,并根据细胞状态和处理强度调整指标组合。
3、不要把 ROS 升高直接等同于氧化应激机制成立
ROS 是常见应激信号,但短时 ROS 波动可以是生理信号,持续 ROS 累积才更接近损伤性氧化应激。仅检测 DCFH-DA 阳性升高,通常不足以说明完整氧化应激机制。
更稳妥的做法是同步检测总 ROS、mtROS、GSH/GSSG、MDA、4-HNE、8-OHdG、NRF2 核转位和抗氧化靶基因,并通过 NAC、GSH 补充或 NRF2 干预验证功能因果。
4、内质网应激不宜只看 CHOP
CHOP 升高提示 ER 应激可能进入失代偿或促死亡阶段,但不能代表全部 UPR。ER 应激至少需要考虑 PERK-eIF2α-ATF4、IRE1-XBP1 和 ATF6 三条分支。不同细胞类型和处理条件下,三条分支可能不同步激活。
若项目涉及分泌细胞、肿瘤、炎症、糖脂代谢或神经损伤,建议将 BiP/GRP78、p-PERK、p-eIF2α、ATF4、CHOP、p-IRE1α、XBP1s 和 cleaved ATF6 组合检测。
5、线粒体应激应覆盖功能、结构和逆行信号
线粒体膜电位下降或 ATP 减少只能提示功能异常,不能完整说明线粒体应激程序。线粒体应激还可能涉及蛋白稳态、导入障碍、mtDNA 稳态、ROS、质量控制、线粒体自噬和核—线粒体逆行信号。
建议将膜电位、ATP、mtROS、氧耗/糖酵解、TOMM20、OPA1、PINK1/Parkin、TFAM、ATF5、HSP60、LONP1 等指标联合设计。
6、复制应激要尽量提供复制叉证据
γH2AX 和 53BP1 可提示 DNA 损伤或复制压力后果,但如果项目结论要聚焦“复制应激”,最好增加 DNA fiber、EdU/BrdU、p-RPA32、p-CHK1、ATR、FANCD2、PCNA 等指标,用于证明复制叉减速、停滞、重启障碍或保护异常。
复制应激项目尤其适合肿瘤、核苷酸代谢异常、放化疗和 DNA 损伤药物机制研究。
7、核仁应激和核糖体毒性应激要区分
核仁应激主要指 rRNA 转录、加工或核糖体组装障碍,常与 NPM1、NCL、FBL、UBF、RPL5/RPL11/5S RNP-MDM2-p53 轴相关。核糖体毒性应激更强调翻译延伸受阻、核糖体碰撞和 ZAKα-p38/JNK 轴。
两者都与核糖体相关,但机制入口不同。若项目只检测 p53 或 c-Jun,很难区分是哪一类核糖体相关应激。
8、溶酶体损伤应激需要区分修复、清除和再生
溶酶体损伤后,细胞可能先通过 ESCRT 相关机制修复膜,再通过 galectin 识别和选择性自噬清除严重受损溶酶体,随后通过 TFEB/TFE3 促进溶酶体再生。不同时间点反映不同阶段。
建议采用时间梯度检测 galectin-3/8、LAMP1/2、cathepsin 外泄、TFEB 核转位、LC3/p62 和溶酶体 pH,避免只用单个 LC3 结果解释全部过程。
9、高尔基体应激要结合 ER-Golgi 运输连续性
高尔基体应激可表现为高尔基体肿胀、碎裂、糖基化异常和分泌通路受阻。它常与 ER 应激相互耦联,但不应完全等同于 ER 应激。
若项目涉及分泌型细胞、病毒感染、糖基化异常或膜蛋白运输障碍,应关注 GM130、TGN46、CREB3、TFE3、ARF4、HSP47、分泌效率和高尔基体形态。
10、机械应激必须控制模型参数
机械应激结果高度依赖基质硬度、细胞密度、拉伸幅度、剪切力大小、加载时间和基质成分。若这些参数不一致,很容易导致结果不可重复。
建议在方案中明确力学输入,并检测 PIEZO1/2、Ca²⁺动态、p-FAK、RhoA/ROCK、YAP/TAZ 核转位、CTGF、CYR61、细胞骨架和功能表型。
11、代谢/营养应激要区分节能适应和代谢崩溃
葡萄糖、氨基酸、脂质或能量不足可激活 AMPK、mTORC1、GCN2、ATF4、自噬和脂代谢程序。代谢下降可能代表细胞主动节能适应,也可能代表失代偿损伤。
建议将 ATP、葡萄糖摄取、乳酸、氧耗/糖酵解、p-AMPK、p-ACC、p-S6K、4EBP1、GCN2、ATF4、LC3 和功能结果联合解释。
12、应激研究需要功能闭环
应激分子变化只有与功能结果连接,才具备机制意义。项目应根据研究目标设置增殖、死亡、迁移、分化、炎症、克隆形成、修复动力学、代谢通量、药物敏感性或动物病理结果。必要时加入阻断、补救或基因干预,证明该应激轴确实驱动当前表型。
KEYAN | 科琰生物特色服务体系Life keyan. Co,lid | 只为让您更省心更放心
询价及订购
感谢您选择科琰生物科研实验服务。
请发送邮件至492252407@qq.com
📞询价及订购13710493647 / 18922329518
广州科琰生物科技有限公司
ADD:广州黄埔区掬泉路广州国际企业孵化器A座A610
HTTPS:www.ky-life.cn
E-mail:492252407@qq.com
TEL:13710493647/18922329518(节假日均可接听)

