思路可复现!Sci Adv最新发现PPT1-GAP43去棕榈酰化轴是棕榈酰化相关脑疾病的潜在新靶点
思路可复现!Sci Adv最新发现PPT1-GAP43去棕榈酰化轴是棕榈酰化相关脑疾病的潜在新靶点
棕榈酰化(palmitoylation)是一种可逆的脂质修饰,在神经元中调控蛋白定位和信号传导。生长相关蛋白43(growth-associated protein 43,GAP43)需要棕榈酰化修饰来参与轴突发育和突触可塑性;然而,其对应的去棕榈酰化酶及其在神经环路中的调控机制尚不清楚。
2026年5月13日,新乡医学院路承彪独立通讯在Science Advances在线发表题为“PPT1 selectively depalmitoylates GAP43 to regulate neuronal excitability and cognitive function”的研究论文。该研究探讨了棕榈酰蛋白硫酯酶1(palmitoyl-protein thioesterase 1,PPT1)是否是 GAP43 的主要去棕榈酰化酶,并进一步研究 PPT1–GAP43 信号通路受损如何影响神经元形态及神经环路功能。
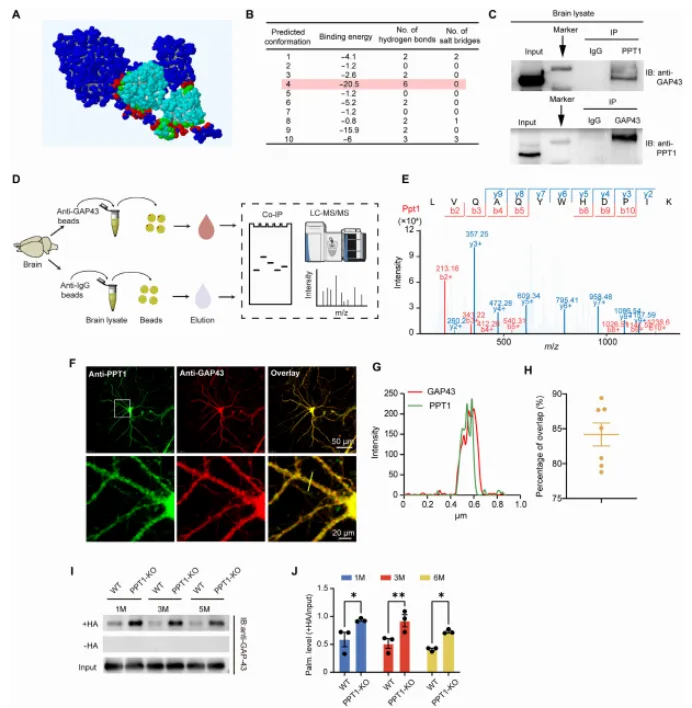
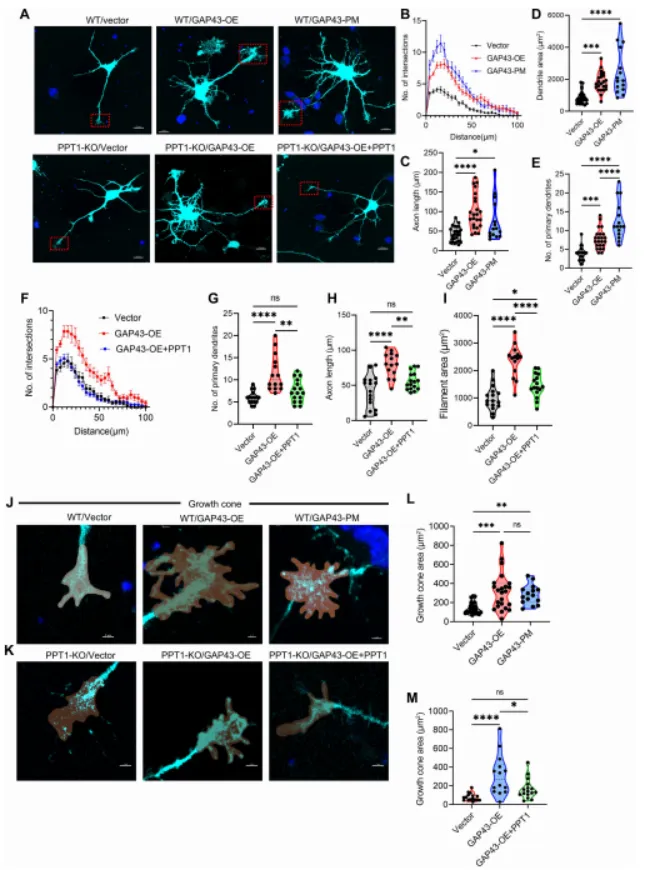
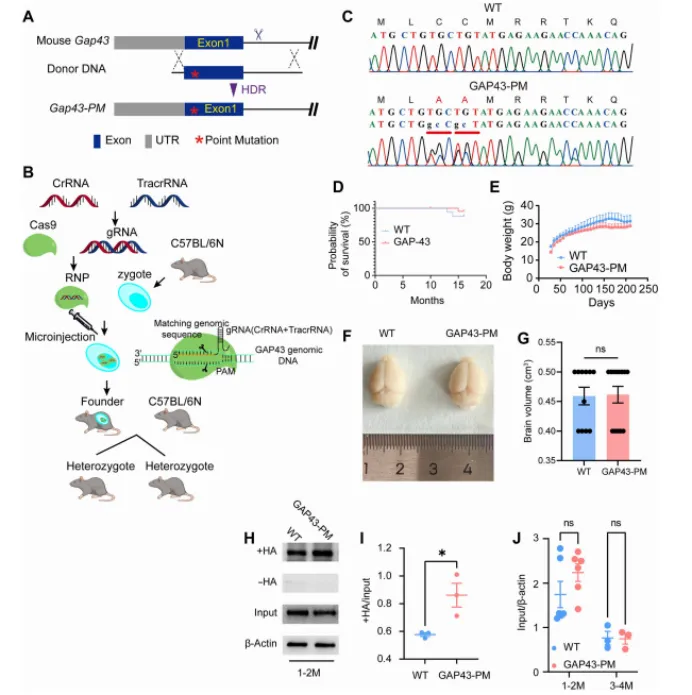
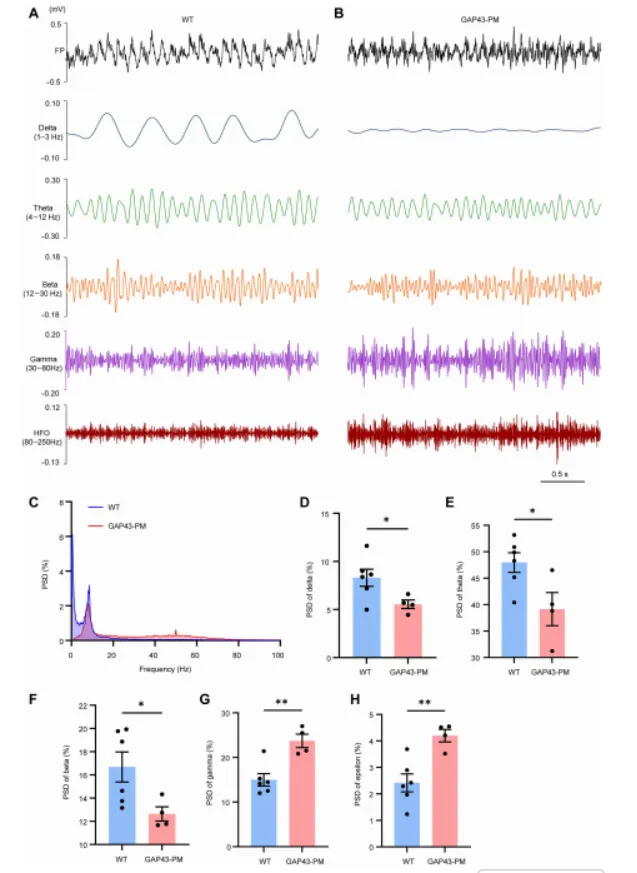
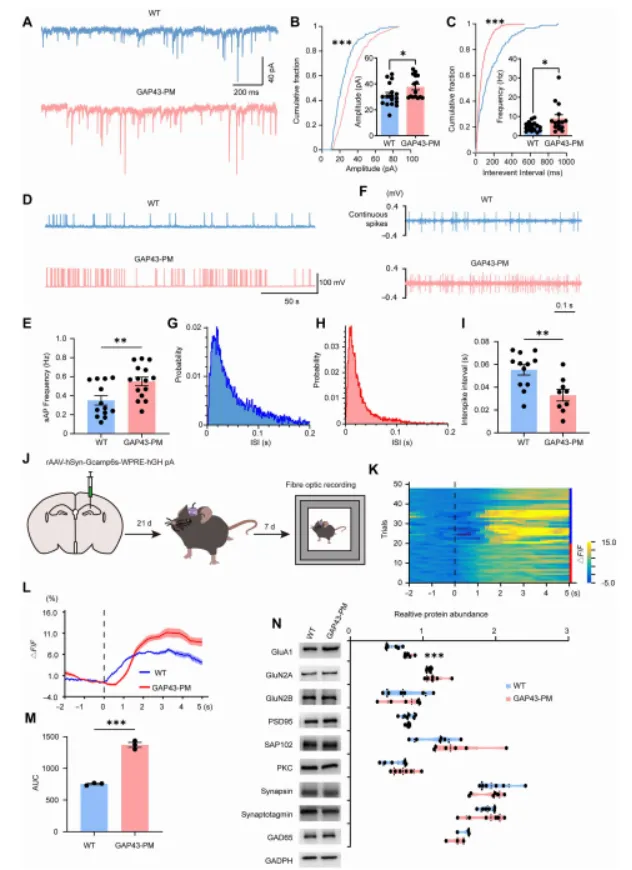
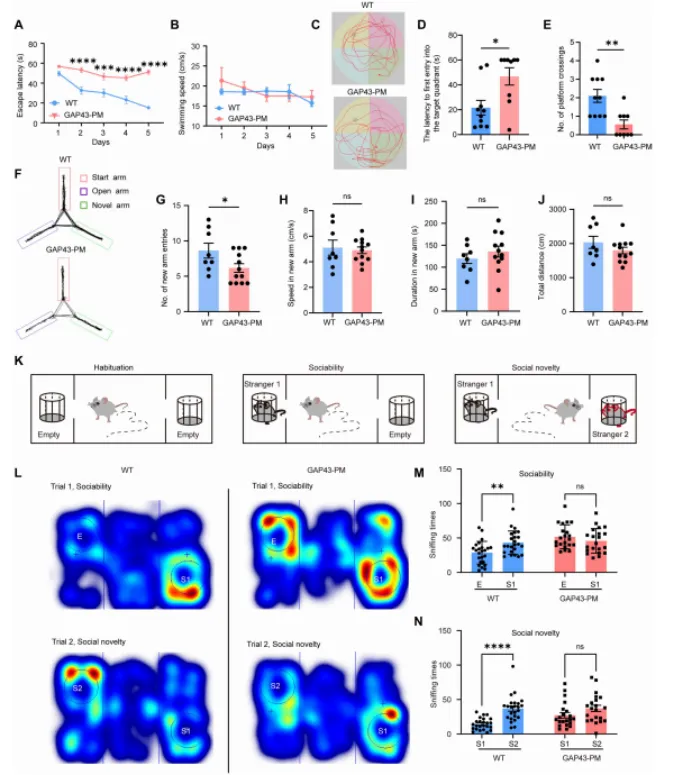
为了明确PPT1是否为GAP43的生理性去棕榈酰化酶并鉴定二者相互作用的关键位点,研究者采用棕榈酰化抑制剂2-BP处理HEK293T细胞,通过酰基-生物素交换(ABE)法检测GAP43棕榈酰化水平;利用Z-DOCK结构建模预测PPT1与GAP43的结合模式;通过免疫共沉淀(co-IP)验证二者在细胞和小鼠脑组织中的直接相互作用;并构建GAP43的Cys³Ala、Cys⁴Ala及C3AC4A双点突变体,检测突变对PPT1结合及去棕榈酰化的影响;同时在PPT1敲除(PPT1-KO)小鼠脑组织中检测GAP43的棕榈酰化水平。研究发现,GAP43在Cys³和Cys⁴位点发生棕榈酰化,PPT1与之直接结合并催化去棕榈酰化;C3AC4A双突变或PPT1缺失均导致GAP43超棕榈酰化,而其总蛋白水平不变。综上,PPT1是GAP43在神经元中的主要去棕榈酰化酶,PPT1-GAP43调控轴依赖于Cys³/Cys⁴位点。为了探究PPT1介导的GAP43去棕榈酰化对早期神经元形态发生(树突分支、轴突生长、生长锥结构)的影响,研究者分离E17.5-18.5胎鼠海马神经元进行原代培养,转染mTFP空载、GAP43-mTFP或GAP43-C3AC4A-mTFP,于培养14小时(早期阶段)进行共聚焦成像;采用Sholl分析评估树突复杂性,测量轴突长度、树突面积及一级树突数量;在PPT1-KO神经元中过表达GAP43并外源给予PPT1蛋白进行挽救实验。结果发现,PPT1缺失或GAP43突变导致神经元早期出现显著过度树突分支、树突面积增大、生长锥面积异常增大;外源性PPT1处理可完全逆转上述形态异常。综上,PPT1-GAP43去棕榈酰化对早期神经形态发生具有关键调控作用,其失调会导致异常过度分支。3. GAP43点突变小鼠表现出GAP43超棕榈酰化为了在体内验证GAP43 C3AC4A突变对棕榈酰化水平的影响并评估该突变小鼠的基本生理特征,研究者利用CRISPR-Cas9技术构建GAP43-C3AC4A点突变敲入小鼠(GAP43-PM),通过测序鉴定基因型;记录小鼠生存曲线、体重及脑体积;取海马组织进行ABE检测和Western blot,分析GAP43棕榈酰化水平及总蛋白表达。结果显示:GAP43-PM杂合小鼠存活率、体重及脑体积与野生型无显著差异,但其海马中GAP43的棕榈酰化水平显著升高,而总蛋白表达不变。综上,GAP43-PM小鼠成功模拟了体内GAP43超棕榈酰化状态,且不伴有整体发育异常。4. GAP43棕榈酰化突变通过增强谷氨酸能传递破坏神经活动为了探究GAP43超棕榈酰化对突触传递、神经元兴奋性及网络振荡的影响,研究者在GAP43-PM小鼠海马CA1区进行在体场电位记录,分析功率谱密度(PSD);在Calyx of Held突触进行全细胞膜片钳记录,检测微小兴奋性突触后电流(mEPSC)的幅度和频率;在脑片记录自发动作电位;在自由活动小鼠中进行光纤光度法记录GCaMP6s标记的钙瞬变;并通过Western blot检测突触相关蛋白(GluA1、GluN2A/B、PSD95等)表达。结果发现:GAP43-PM小鼠海马呈现高频振荡增强、低频振荡减弱,提示网络高兴奋性;mEPSC幅度和频率显著增加,自发放电频率升高,钙信号增强;GluA1表达特异性上调,其他突触蛋白无明显变化。综上,GAP43超棕榈酰化通过上调GluA1增强谷氨酸能传递,导致神经元超兴奋和网络节律紊乱。5. GAP43去棕榈酰化受损破坏空间记忆与社交行为为了评估GAP43超棕榈酰化是否导致认知和社会行为缺陷,研究者对2-3月龄GAP43-PM小鼠进行Morris水迷宫测试(学习记忆)、Y迷宫测试(空间工作记忆)、三厢社交测试(社交能力与社交新颖性),并同步进行步态分析以评估运动功能。结果显示:GAP43-PM小鼠在水迷宫学习中潜伏期延长,目标象限首次进入时间增加、平台穿越次数减少;Y迷宫中新颖臂进入次数显著减少;三厢测试中社交能力和社交新颖性均受损;而步态参数及运动速度与野生型无差异。综上,GAP43去棕榈酰化受损特异性导致认知和社交缺陷,但不影响运动功能。6. PPT1-GAP43轴作为神经元棕榈酰化动态的关键调控通路为了系统总结PPT1-GAP43去棕榈酰化通路的生理与病理意义,并与既往研究进行对比,研究者综合本研究的实验数据及既往文献,分析了PPT1作为GAP43主要去棕榈酰酶的证据;比较了GAP43-PM小鼠与PPT1全敲小鼠的表型差异;探讨了超棕榈酰化导致早期过度分支后期可能退行性改变的时相依赖性;分析了GluA1上调与钙超载的机制联系;并提出了选择性超棕榈酰化对认知而非运动功能的选择性影响。
最终认为:PPT1-GAP43轴是神经元棕榈酰化动态的核心调控通路,其破坏导致GAP43超棕榈酰化,引发早期过度分支、突触超兴奋、网络节律紊乱及认知社交缺陷;该模型首次将棕榈酰化状态与蛋白表达水平解耦,揭示了棕榈酰化循环在神经发育和环路稳态中的独立调控作用;PPT1-GAP43轴是神经发育障碍(如CLN1病)的潜在治疗靶点。
本研究通过结合生化实验、结构建模、利用 CRISPR-Cas9 构建的 GAP43 点突变小鼠(GAP43-PM)、PPT1 敲除小鼠(PPT1-KO)、电生理学以及行为学分析,作者证实 PPT1 可通过与 GAP43 的 Cys3 和 Cys4 位点相互作用介导其去棕榈酰化。
该相互作用的破坏会导致 GAP43 过度棕榈酰化(hyperpalmitoylation),进而引起过度的树突分枝(dendritic arborization)和异常生长锥扩张(growth cone expansion),增强谷氨酸能神经传递,并导致海马神经网络过度兴奋(hyperexcitability),最终造成认知功能缺陷,而这一过程并不伴随溶酶体贮积病理改变。此外,外源性 PPT1 能够减轻上述形态学和突触异常。本研究表明,PPT1–GAP43 去棕榈酰化通路对于维持神经环路稳态至关重要,其功能异常可能参与神经发育障碍的发生,并提示该通路可能成为棕榈酰化相关神经发育疾病的潜在治疗靶点。
这篇文章的主要亮点就在于用C3AC4A双点突变模拟“去棕榈酰化受阻”,而非直接敲除GAP43,从而将修饰状态与表达水平解耦。这一策略可广泛应用于我们翻译后修饰的相关研究:模拟持续修饰:将修饰位点突变为不能发生修饰的残基(如Cys→Ser/Ala),阻断修饰循环,造成类似“去修饰缺陷”表型。
模拟持续去修饰:引入能模拟修饰状态的突变(如棕榈酰化可用Cys→非水解类似物,但较难;磷酸化可用Glu/Asp)。更简单的做法是过表达writer或eraser来改变整体修饰水平,但此法改变全局修饰,需配合位点特异性突变确认。
因此对于大多数PTM,可先构建修饰位点敲入小鼠(如Cys→Ser或Lys→Arg),观察该位点特异性阻断是否重现疾病表型。
悉术生物致力于成为您的高水平科研合作者!
我们不仅优化文本,更致力于深化您的科学思路!
基于您已有的研究积累协助您共同进行顶层设计,重塑研究方案,
构建更具说服力与资助价值的标书方案,显著提升您的科研竞争力。
本文来自网友投稿或网络内容,如有侵犯您的权益请联系我们删除,联系邮箱:wyl860211@qq.com 。